
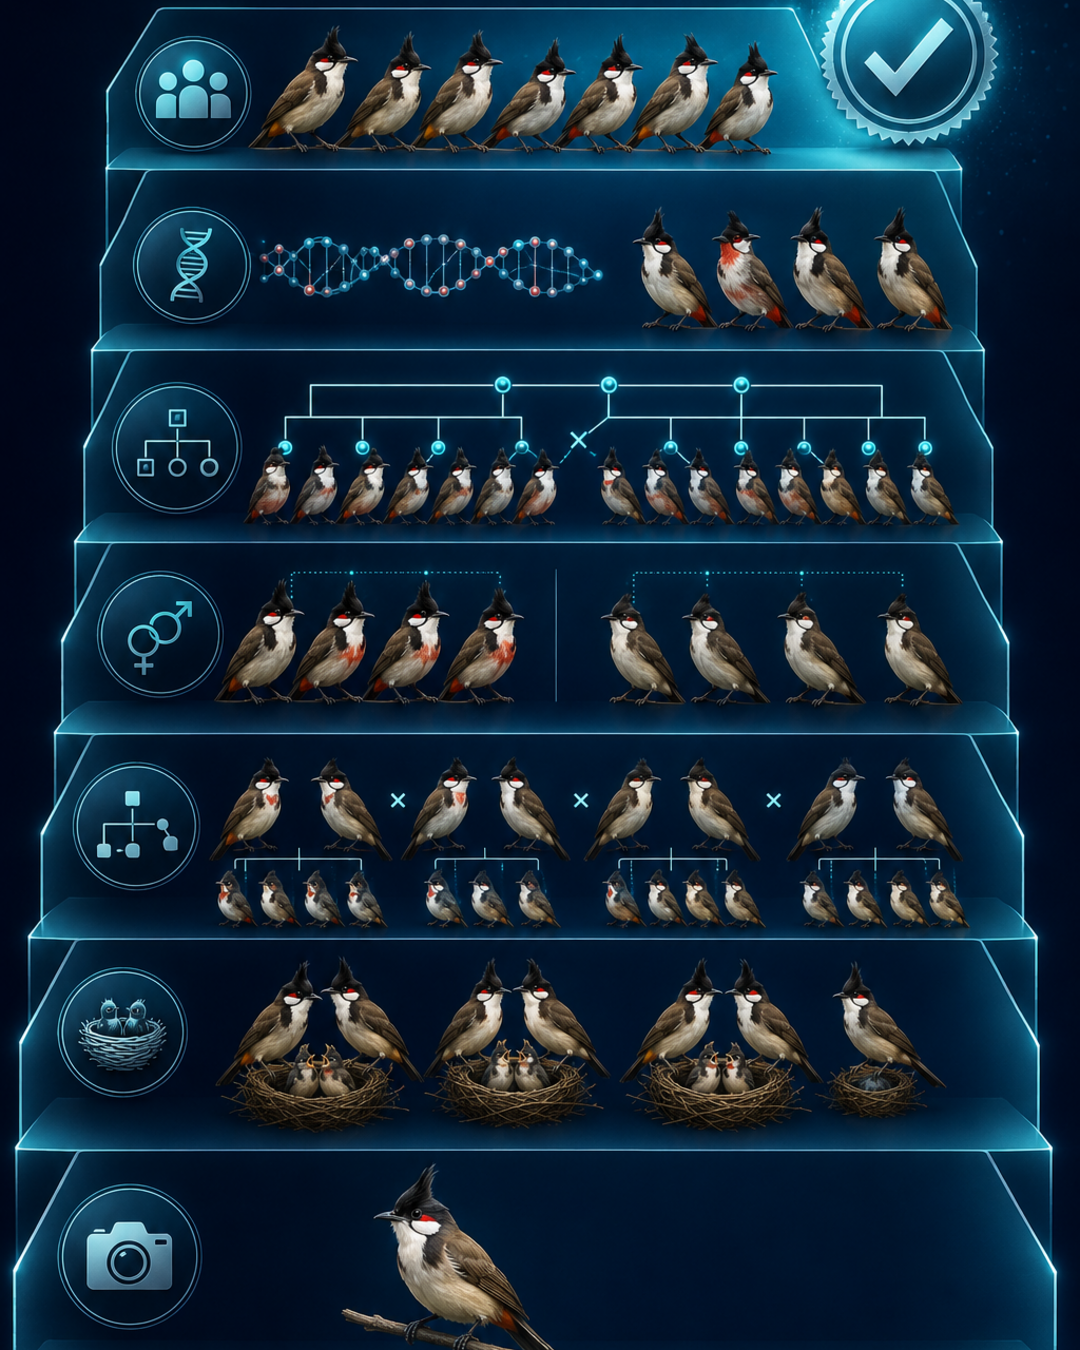
AI có thể đo màu lông nhìn thấy, so sánh các mô hình di truyền và mô phỏng phép ghép khi dữ liệu đủ tốt. Nhưng một ảnh điện thoại không thể xác nhận sắc tố hóa học, gene gây màu, chim mang gene lặn hay tỷ lệ đời con chắc chắn. BioBirdDNA vì vậy tách rõ ảnh, hóa sinh, phả hệ, đời con và DNA thành các tầng bằng chứng độc lập.
Các cá thể Bạch, Mơ, Bông, Nâu hay Xám thường được gọi ngay là “đột biến gene”, dù bằng chứng chưa đủ. Code chỉ có giá trị khi hệ thống biết mình đang đo gì, giữ sự bất định và từ chối kết luận thiếu dữ liệu. Bài này trình bày cách biến ảnh màu, hồ sơ thay lông, phả hệ và đời con thành dữ liệu có thể kiểm tra.
Bấm Thêm để Google ưu tiên hiện bài chăm chim của TAICHEL cho bạn.
AI không phải máy nhìn lông rồi đọc gene
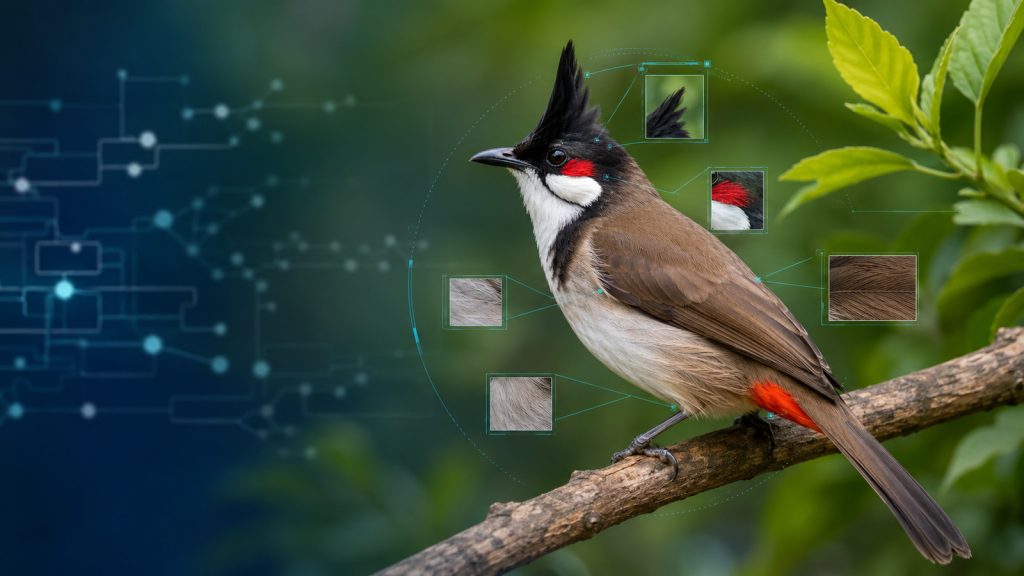
Một bức ảnh chứa thông tin về ánh sáng phản xạ tới cảm biến, sau đó đã bị điện thoại xử lý cân bằng trắng, HDR, tương phản, độ bão hòa, khử nhiễu và nén JPEG. Vì vậy, code nhìn thấy màu của ảnh, không trực tiếp nhìn thấy phân tử trong lông. Cùng một vùng nâu có thể liên quan đến melanin, vi cấu trúc lông, lông cũ bị bạc, ánh sáng hoặc cách camera xử lý.
Code cũng không nhìn được một cá thể bình thường có mang allele lặn hay không. Hai chim có ngoại hình giống nhau vẫn có thể khác kiểu gene. Muốn chuyển từ “màu nhìn thấy” sang “màu có truyền”, bắt buộc phải nối hồ sơ cá thể với bố mẹ, giới tính, toàn bộ đời con, các mốc thay lông và cuối cùng là DNA. Đây là nguyên tắc nền của kho kiến thức chào mào TAICHEL: mô tả đúng điều quan sát được trước khi đặt tên cơ chế.
Bốn câu hỏi thường bị trộn thành một
Khi nói “dự đoán sắc tố”, người dùng thường đang hỏi bốn việc khác nhau. Thứ nhất, vùng lông nhìn trắng, kem, nâu, xám hay đỏ đến mức nào? Thứ hai, chất hoặc cấu trúc nào tạo ra màu đó? Thứ ba, kiểu hình có truyền theo mô hình lặn, trội, liên kết giới tính hay không di truyền? Thứ tư, locus hoặc biến thể DNA nào là nguyên nhân?
| Câu hỏi | Dữ liệu tối thiểu | Trần kết luận |
|---|---|---|
| Màu và pattern nhìn thấy? | Ảnh chuẩn hóa | Kiểu hình định lượng |
| Sắc tố hoặc cấu trúc nào? | Phổ, Raman, HPLC hoặc phép đo phù hợp | Thành phần hóa học/vật liệu |
| Truyền theo mô hình nào? | Phả hệ, giới tính và toàn bộ đời con | Mô hình di truyền được hỗ trợ |
| Gene nào gây ra? | DNA đồng phân ly, đối chứng và tái lập | Locus/biến thể theo mức bằng chứng |
Genome tham chiếu của chào mào là bản đồ để căn chỉnh và tìm vùng ứng viên; nó không tự biến thành xét nghiệm gene màu. Trong rà soát đến ngày 31/07/2026, BioBirdDNA chưa tìm thấy công bố phản biện xác nhận trực tiếp một locus màu lông cụ thể cùng công thức truyền tương ứng ở Pycnonotus jocosus.
Năm tầng dữ liệu và điều code được phép nói
| Tầng | Dữ liệu | Code làm được |
|---|---|---|
| 1 | JPEG hoặc video thường | Sàng lọc vùng màu, phát hiện ảnh lỗi |
| 2 | Ảnh gốc/RAW, chuẩn màu và ánh sáng | Đo màu, diện tích mảng, đối xứng, thay đổi theo thời gian |
| 3 | Ảnh đa phổ, siêu phổ hoặc máy đo phổ | Đo phản xạ theo bước sóng, có thể mở rộng tới UV |
| 4 | Raman, HPLC, LC-MS, hiển vi | Hỗ trợ xác định pigment hoặc cấu trúc |
| 5 | Phả hệ, đời con và DNA | So sánh mô hình, tìm locus đồng phân ly |
Ảnh kỹ thuật số đo được toàn bộ pattern; máy đo phổ đo phản xạ theo bước sóng tại một điểm. Hai cách bổ sung cho nhau. Khi theo dõi qua mùa, cần ghi đúng giai đoạn và đọc thêm kỹ thuật chăm lông để không nhầm lông cũ, lông mới và bạc màu.
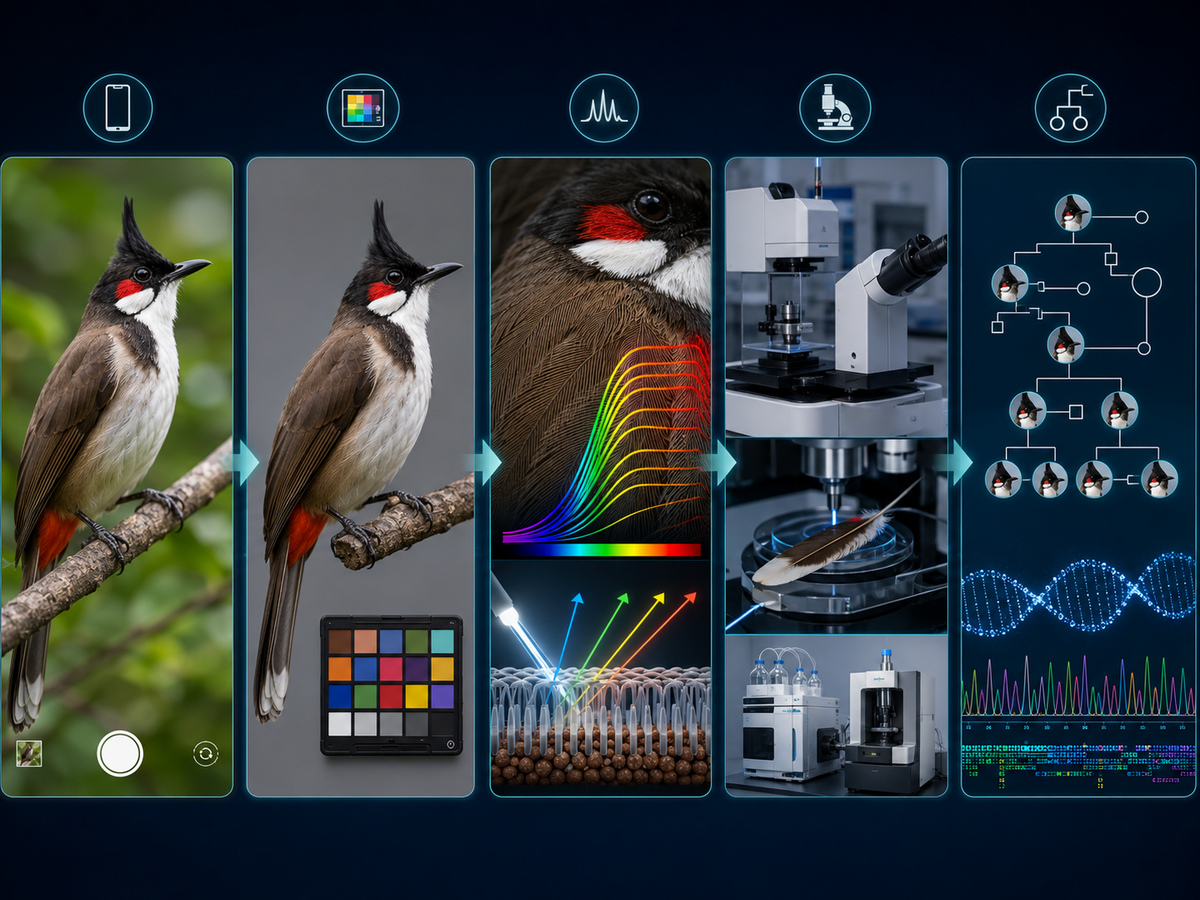
Code phân tích ảnh chào mào thực sự làm được gì?
Bước đầu tiên không phải phân loại Bạch hay Mơ, mà là kiểm tra ảnh: rung, mất nét, cháy vùng trắng, bệt vùng đen, ám màu, flash gây mắt đỏ, nén mạnh, ảnh ghép hoặc ảnh AI. Hệ thống nên trả một trong các trạng thái: đủ điều kiện đo, chỉ xem bằng mắt, cần chụp lại, nghi artefact hoặc không sử dụng được.
Sau đó code hiệu chuẩn màu, tách chim khỏi nền và chia vùng cơ thể như mào, má đỏ, má trắng, lưng, cánh, đuôi, hậu môn, mắt, mỏ và chân. Nếu bỏ bước này, nền lồng trắng có thể bị tính thành lông trắng, cầu nâu thành màu lưng, bóng tối thành melanism. Các đặc trưng hữu ích gồm tỷ lệ trắng–kem–nâu–xám–đỏ, số mảng, kích thước mảng lớn nhất, độ sắc ranh giới, độ đối xứng trái phải và mức thay đổi sau mỗi mùa lông.
Đối chứng phải tương đồng về tuổi, nguồn địa lý, giai đoạn thay lông, điều kiện chụp và tình trạng lông. Không nên so một cá thể với ảnh “chào mào thường” bất kỳ trên mạng. Người gửi có thể bắt đầu bằng hướng dẫn nhận biết chào mào đúng loài và nuôi có trách nhiệm, rồi lưu ảnh gốc theo cùng một quy trình.
Pigment Phenotype Engine: xếp hạng kiểu hình, không chẩn đoán gene
BioBirdDNA đề xuất một pipeline gồm kiểm tra nguồn ảnh, cổng chất lượng, hiệu chuẩn màu, segmentation, trích xuất đặc trưng, căn chỉnh ảnh theo thời gian, bộ quy tắc kiểu hình, model học máy, hiệu chuẩn độ tin cậy, phát hiện dữ liệu ngoài phân bố và review người. Khi dữ liệu còn ít, rule-based nên đi trước deep learning vì dễ giải thích và sửa.
Ví dụ: mắt đỏ chỉ xuất hiện trong ảnh flash làm tăng nguy cơ artefact, không tăng bằng chứng albino; vùng trắng tăng qua nhiều mùa làm tăng giả thuyết bạc trắng tiến triển; lông đen chuyển nâu nhưng pattern còn làm tăng giả thuyết Brown; cụm lông trắng đúng vùng từng chấn thương làm tăng giả thuyết mắc phải. Đây chỉ là điểm định hướng theo bộ thuật ngữ màu, không phải chẩn đoán.
Model phải có lớp “chưa xác định”. Confidence 0,92 không đồng nghĩa đúng 92% nếu chưa hiệu chuẩn hoặc ảnh nằm ngoài dữ liệu huấn luyện. Ảnh loài khác, ánh sáng màu, lông nhuộm hay mutation chưa từng gặp cần cổng từ chối. Chỉ hồ sơ đầy đủ mới phù hợp đưa vào case study.
Từ phenotype đến mô hình di truyền
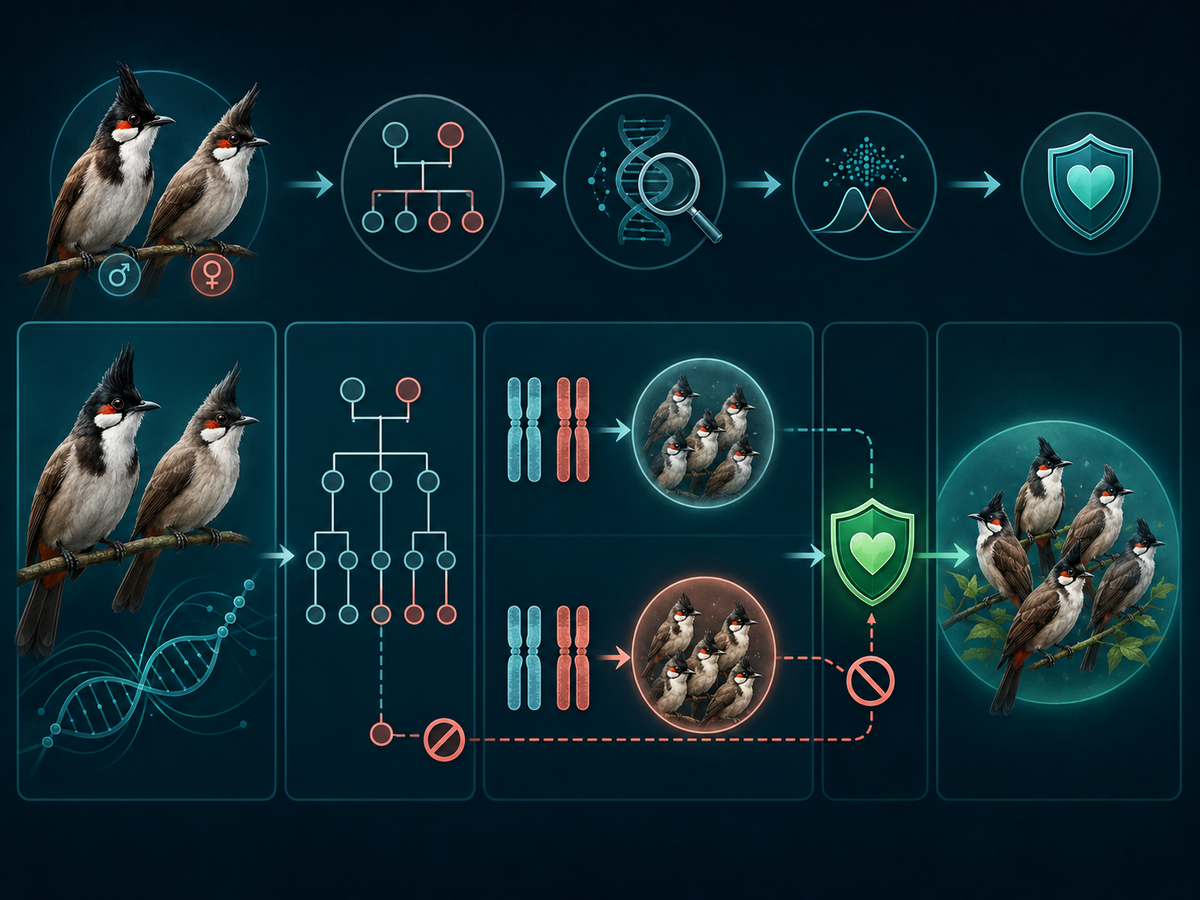
Đầu ra từ ảnh không được nối thẳng vào bảng Punnett. Cổng dữ liệu cần có ID bố mẹ, giới tính và phương pháp xác định, số trứng, số có phôi, số nở, số sống đến ra lông và thay lông đầu, phenotype ở từng mốc, các con bình thường, con màu và con chưa phân loại. Chỉ lưu con màu sẽ tạo sai lệch nghiêm trọng.
Bộ suy luận tối thiểu nên so sánh cả mô hình không di truyền, lặn thường, trội thường, trội không hoàn toàn, lặn hoặc trội liên kết Z, tương tác hai locus, đa gene, độ thấm không hoàn toàn và phụ thuộc tuổi/khảm. Mỗi mô hình có prior, quy tắc giao tử, không gian genotype, bản đồ genotype–phenotype, độ thấm, sức sống và sai số quan sát.
Posterior chỉ là mức hỗ trợ tương đối trong tập mô hình đã kiểm tra, không phải “xác suất gene tồn tại”. Phép ghép nghiên cứu phải theo kỹ thuật nuôi sinh sản, đặt phúc lợi và sức khỏe trước màu.
Code tạo công thức ghép như thế nào?
Khi mô hình và genotype cha mẹ đã biết, Punnett Engine tính phân bố genotype, phenotype và giới tính đời con. Nếu genotype hoặc mô hình chưa chắc, hệ thống phải giữ các khả năng dưới dạng xác suất và trình bày riêng từng mô hình.
Ví dụ lặn thường N/m × N/m cho 25% N/N, 50% N/m và 25% m/m. Nếu m/m biểu hiện hoàn toàn, xác suất mỗi con biểu hiện là 25%; không có nghĩa bốn con chắc chắn có một con màu. Lứa nhỏ, độ thấm, chết phôi và sai số quan sát đều có thể làm tỷ lệ lệch.
Ở chim, trống là ZZ và mái là ZW. Trong mô hình lặn liên kết Z giả định, trống ZᵐZᵐ ghép mái ZᴺW có thể cho con trống mang allele và con mái biểu hiện; đảo chiều cho kết quả khác. Đây chỉ là minh họa toán học. Xem thêm phân biệt chào mào trống mái để hiểu giới hạn quan sát.
Hai chế độ ghép và cổng chặn cận huyết
Ghép nghiên cứu chọn cặp mà các mô hình dự đoán khác nhau rõ nhất. Lai thuận–nghịch có thể phân biệt lặn thường với liên kết Z. Ghép mục tiêu tìm phenotype mong muốn nhưng phải đứng sau sức khỏe, phúc lợi, huyết thống và đa dạng.
Cùng cá thể, cha–con, mẹ–con và anh–em ruột phải bị chặn mặc định. Công thức ghép cần ghi mô hình, xác suất genotype, kết quả theo giới, bất định, cận huyết, dữ liệu thiếu và mô hình thay thế. Theo triết lý bảo tồn, màu hiếm không được đặt cao hơn sức khỏe và đa dạng.
Thang bằng chứng G0–G6 cho cộng đồng
| Mức | Dữ liệu | Câu chữ tối đa |
|---|---|---|
| G0 | Một ảnh hoặc kiểu hình đơn | Quan sát màu; chưa đánh giá di truyền |
| G1 | Một cặp hoặc một lứa | Mô hình thăm dò |
| G2 | Nhiều lứa cùng cặp | Mô hình ứng viên |
| G3 | Nhiều cặp độc lập, có giới và chiều ghép | Quy luật phân ly được hỗ trợ |
| G4 | Phả hệ nhiều thế hệ và test cross | Mô hình di truyền mạnh |
| G5 | DNA đồng phân ly | Locus hoặc biến thể được hỗ trợ |
| G6 | Tái lập độc lập hoặc bằng chứng chức năng | Cơ chế được xác nhận mạnh trong phạm vi nghiên cứu |
Thang này ngăn việc một cá thể đẹp lập tức bị gọi là “gene mới”. Nó cũng tạo cách để nghệ nhân, người có chuyên môn, người nuôi sinh sản và coder đóng góp cùng một hồ sơ mà không cần đồng ý ngay về cơ chế. Những ghi chép thực địa có giá trị nên được lưu cùng bối cảnh và người quan sát, phù hợp với tinh thần văn hóa nghệ nhân.
Bộ dữ liệu tối thiểu và cách đánh giá AI
Mỗi cá thể cần ID, nguồn gốc, giới, tuổi, cha mẹ, sức khỏe, mốc thay lông, ảnh gốc hai bên, cận mắt–mỏ–chân, cánh–đuôi và lịch sử tổn thương. Mỗi lứa phải lưu cả trứng không phôi, chết phôi, con bình thường và chưa phân loại.
Không chia ngẫu nhiên theo ảnh khi một con có nhiều ảnh: model có thể học lồng, nền hoặc chính cá thể. Cần chia theo cá thể, gia đình, người nuôi và thiết bị; đánh giá Macro-F1, balanced accuracy, calibration và kiểm định ngoài cơ sở nuôi.
Roadmap bắt đầu từ chuẩn dữ liệu và rule-based, rồi mới đến Punnett, Bayes, pedigree, ảnh và phân tử. Có thể tham khảo kiến thức họa mi và chim cảnh khác, nhưng không được gán bằng chứng khác loài thành gene chào mào.
Kinh nghiệm chăm sóc không thay thế tư vấn thú y.
Câu hỏi thường gặp
AI nhìn ảnh có biết chim mang gene lặn không?
Không. Carrier có thể nhìn hoàn toàn bình thường. Cần phả hệ, đời con hoặc DNA; ảnh chỉ đo phần kiểu hình đang biểu hiện.
Ảnh RAW có xác định eumelanin và pheomelanin không?
RAW giúp đo màu ổn định hơn JPEG nhưng vẫn không tự xác nhận thành phần hóa học. Muốn phân biệt pigment cần phép đo hóa sinh hoặc phổ phù hợp.
Có thể tạo bảng ghép khi chưa biết genotype cha mẹ không?
Có, nếu biểu diễn genotype bằng phân bố xác suất và ghi rõ mô hình giả định. Kết quả là hỗ trợ quyết định, không phải lời bảo đảm.
Model đứng đầu 80% có nghĩa đúng 80% không?
Không nhất thiết. Cần hiệu chuẩn confidence, kiểm tra dữ liệu ngoài phân bố và test độc lập trước khi diễn giải như xác suất đúng.
Có nên dùng cận huyết để nhanh xác nhận màu lặn?
Không nên đặt mục tiêu màu lên trên sức khỏe. Cặp gần phải bị chặn hoặc review nghiêm, đồng thời ưu tiên phép ghép nghiên cứu ít rủi ro hơn.
Tài liệu tham khảo
- Stevens M. và cộng sự (2007), Using digital photography to study animal coloration, Biological Journal of the Linnean Society.
- Troscianko J. & Stevens M. (2015), Image calibration and analysis toolbox, Methods in Ecology and Evolution.
- van den Berg C.P. và cộng sự (2020), Quantitative Colour Pattern Analysis, Methods in Ecology and Evolution.
- Hogan B.G. & Stoddard M.C. (2024), Hyperspectral imaging in animal coloration research, PLOS Biology.
- Galván I. & Solano F. (2016), Bird integumentary melanins, International Journal of Molecular Sciences.
- Guo C. và cộng sự (2017), On Calibration of Modern Neural Networks, ICML.
- Gorjanc G. & Hickey J.M. (2018), AlphaMate, Bioinformatics.
- Mongkolphan C. và cộng sự (2017), Genomic DNA sex identification in pet red-whiskered bulbul, Japanese Journal of Veterinary Research.
- van Grouw H. (2021), Nomenclature for colour aberrations in birds reviewed, Bulletin of the British Ornithologists’ Club.
- Hemmings N.L. và cộng sự (2012), Inbreeding causes early death in a passerine bird, Nature Communications.
Kết luận: Công thức ghép phải mang theo giả định, bất định, mức bằng chứng và cổng phúc lợi. Dữ liệu cộng đồng chuẩn hóa sẽ biến cá thể màu hiếm thành hồ sơ có thể kiểm tra, thay vì lời khẳng định gene không thể tái lập. Xem thêm dự án tại TAICHEL.