
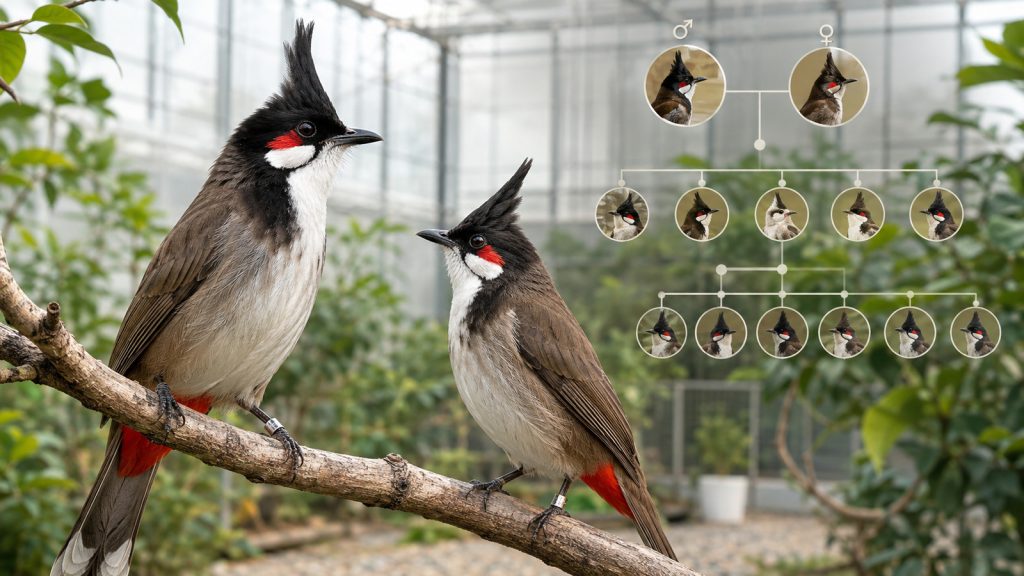
Chào mào Bông × Nâu chưa có công thức gene được xác nhận. Bản mô phỏng này tách kiểu hình, so sánh ba mô hình F1–F2, ghi cả trứng và chim không sống, rồi mới xem dữ liệu phù hợp giả thuyết nào hơn.
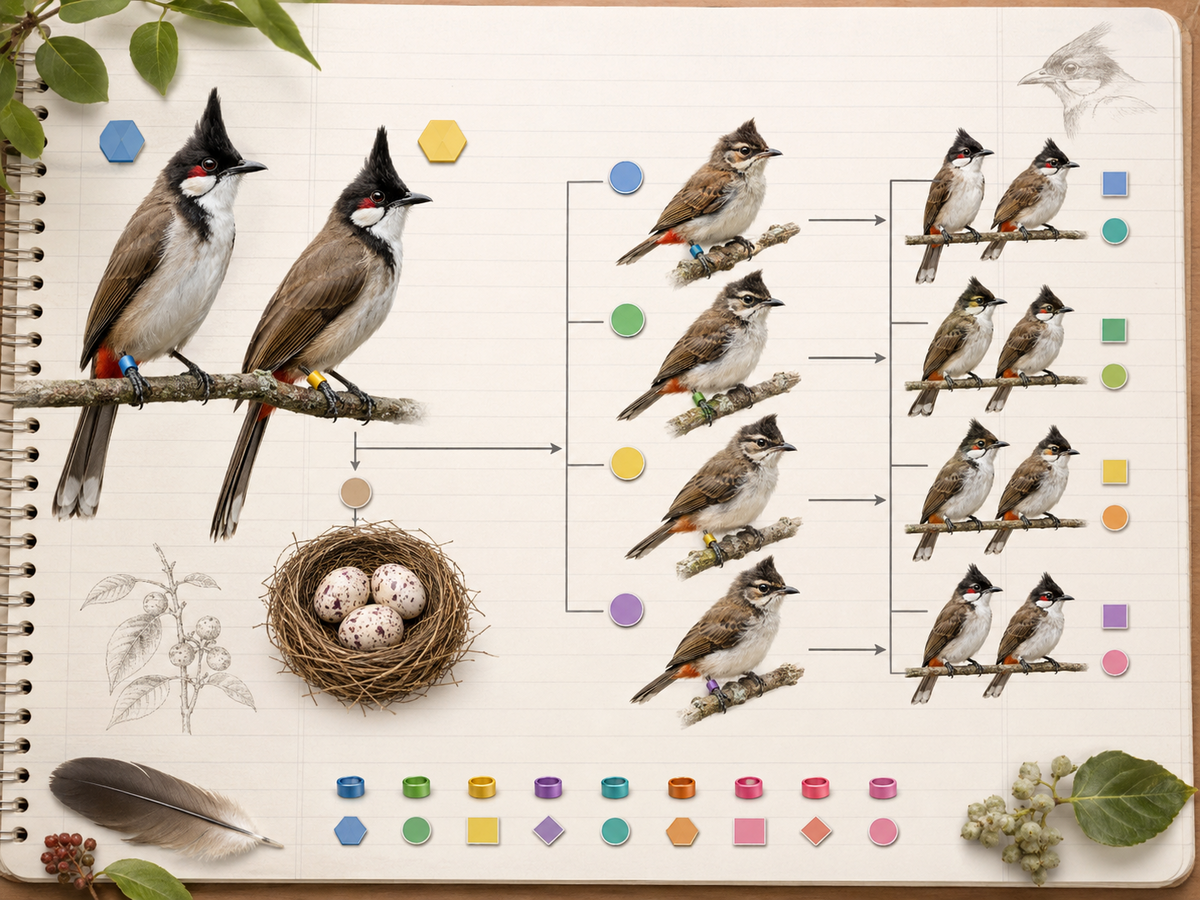
Tóm tắt nhanh: “Bông” và “Nâu” trong bài này là nhãn kiểu hình cộng đồng, không phải tên gene. Mô hình khởi đầu hai tính trạng lặn, độc lập dự đoán F1 nhìn bình thường và F2 có thể xấp xỉ 9 bình thường : 3 Nâu : 3 Bông : 1 Bông + Nâu. Đây là tỷ lệ kỳ vọng của một giả định, không phải lời hứa số con thực tế. Bản revision này bổ sung dữ liệu định lượng ảnh, kiểm tra giới tính, mô hình Bông che Nâu, mô hình Nâu liên kết Z và bảng ghi toàn bộ trứng–phôi–chim con.
Bấm Thêm để Google ưu tiên hiện bài chăm chim của TAICHEL cho bạn.
1. Bản mới khác gì so với bài cũ?
Bản revision khóa bốn biến trước khi tính: đo vùng trắng và nâu bằng ảnh chuẩn hóa; xác định giới tính vì ngoại hình không đủ cho mô hình liên kết Z; chạy M1, M2, M3 song song với M0; giữ cả trứng không phôi, phôi chết, con không nở và ảnh lỗi trong mẫu số. Đây là quy trình kiểm tra, không phải lời hứa tỷ lệ.
Nếu cần kiến thức nền về cách gọi “Bông”, có thể đọc thêm Chào Mào Bông Là Gì? và bài Gene màu lông chim: MC1R, ASIP, BCO2. Hai bài này cũng không thay thế cho phả hệ hoặc DNA của một cá thể cụ thể.
Để thấy khác biệt giữa bài giải thích nền và bài thiết kế phép lai, đối chiếu thêm bài F1–F2 và lai ngược đã có, bài ảnh Bông/Bạch trước khi gọi đột biến và bài AI dự đoán sắc tố. Các liên kết này chỉ là ngữ cảnh nội bộ, không phải dữ liệu di truyền của cá thể.
Bạn cũng có thể đối chiếu bài phân biệt Bạch, Mơ, Bông, bài về giá trị chim chào mào và tiêu chí chăm lông khi thay lông. Những bài này giúp tách câu hỏi nhận diện, giá trị và chăm sóc khỏi câu hỏi di truyền.
2. Khóa nghĩa Bông và Nâu trước khi tính
“Bông” có thể là đốm trắng khu trú, piebald/leucism, bạc hóa tiến triển, tổn thương nang lông hoặc lỗi ánh sáng. “Nâu” phải được chấm trên vùng vốn tối (mào, vệt má, cánh, đuôi), trên lông mới mọc và có ảnh đối chứng cùng ánh sáng. Lưng hơi nâu tự nhiên của chào mào không tự động trở thành kiểu hình Nâu.
Một cá thể được tạm ghi Bông + Nâu chỉ khi cả hai điều kiện đều đạt:
- Có vùng mất hoặc giảm sắc tố được khoanh theo vị trí, diện tích và tính đối xứng; đã ghi chú flash, filter, lông bẩn, nắng gắt và chấn thương.
- Ở vùng còn sắc tố, phần đen/tối dịch sang nâu ổn định qua ảnh chuẩn hóa hoặc qua ít nhất một lần thay lông.
Các gene như EDNRB2 hay TYRP1 chỉ là ví dụ từ gà, bồ câu, cút và các loài chim khác. Một nghiên cứu so sánh hệ gene năm 2025 ghi nhận biến thiên EDNRB2 liên quan đến nhiều kiểu mất melanin ở chim, nhưng chính tác giả cũng nhấn mạnh rằng khả năng chuyển kết quả từ loài nuôi sang kiểu hình loài hoang dã phải được kiểm tra, không được suy ra trực tiếp cho chào mào. Vì vậy trong bài này: gene_status = not_assessed, biochemical_pigment_status = unconfirmed.
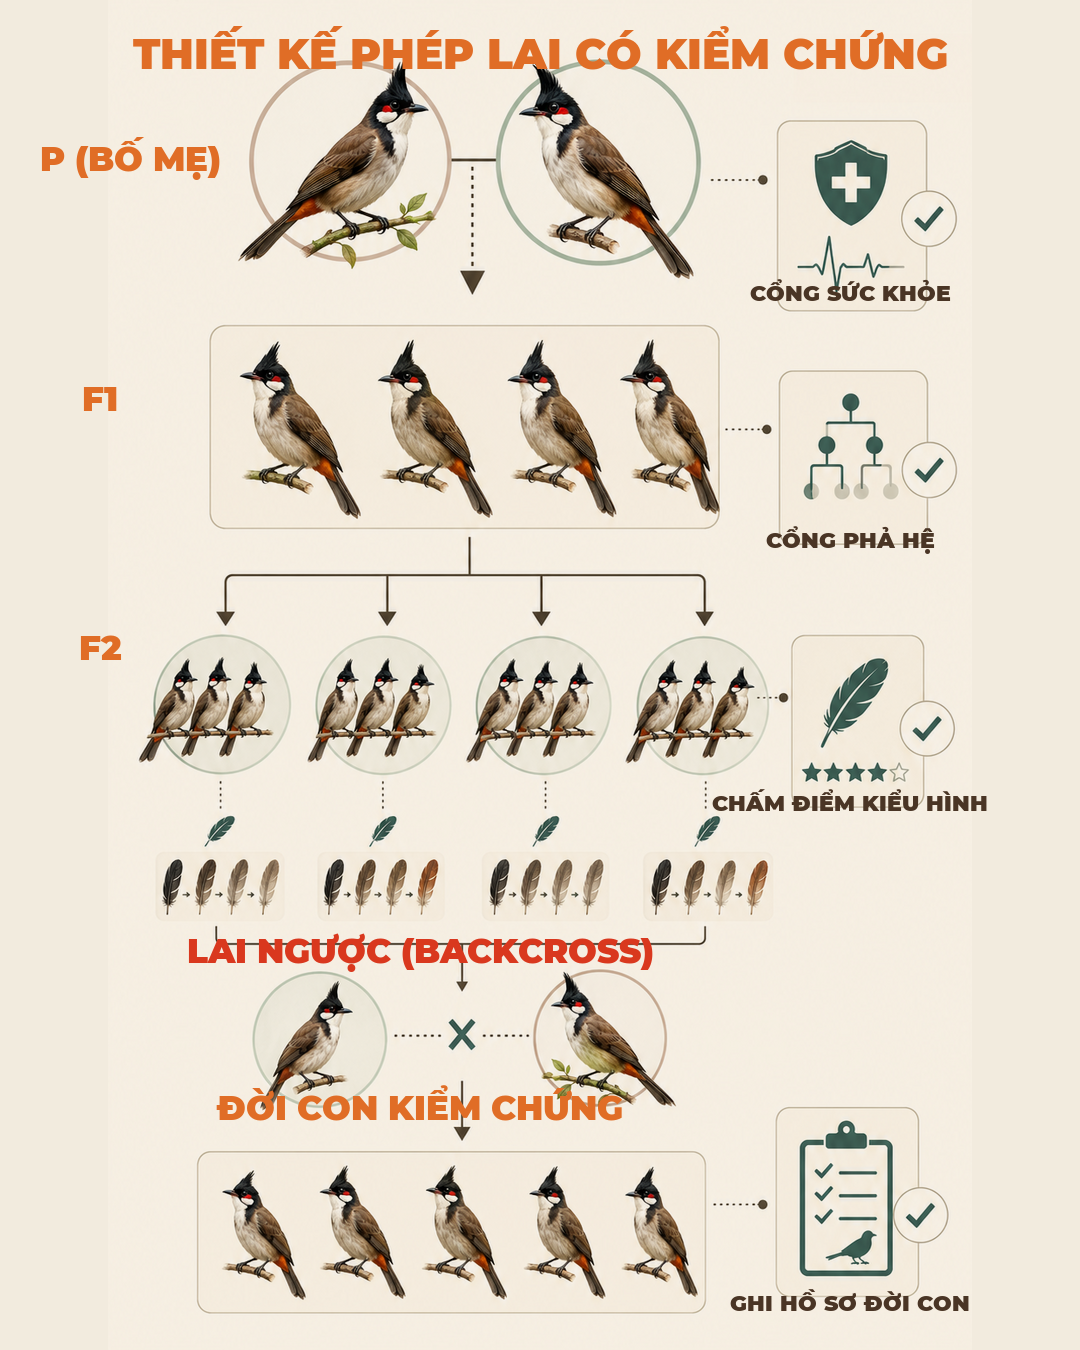
3. Thiết kế thí nghiệm P → F1 → F2
Mỗi cá thể cần mã ổn định, ví dụ CM-P-BO-001, CM-P-NA-002; tên “con bông đẹp” chỉ là biệt danh. Ghi đủ cha, mẹ, dòng, ngày nở, nguồn, phương pháp xác định giới tính, sức khỏe và ảnh gốc.
Thiết kế tối thiểu:
Nếu có điều kiện, dùng ít nhất hai gia đình Bông và hai gia đình Nâu độc lập. Một cặp cho 40 con không tương đương 40 con từ 20 cặp; family effect và môi trường phải được giữ trong dữ liệu.
4. Mô hình M1: hai locus lặn thường, phân ly độc lập
Đây là mô hình minh họa, không phải ký hiệu gene thật. Gọi allele ứng viên của Bông là s, của Nâu là d:
F1 Ss Dd tạo bốn loại giao tử nếu hai locus độc lập: SD, Sd, sD, sd, mỗi loại 25%. Khi F1 × F1, bốn nhóm kiểu hình kỳ vọng là:
| Nhóm F2 | Điều kiện mô hình | Tỷ lệ kỳ vọng |
|---|---|---|
| Bình thường | S_ D_ | 9/16 = 56,25% |
| Nâu | S_ dd | 3/16 = 18,75% |
| Bông | ss D_ | 3/16 = 18,75% |
| Bông + Nâu | ss dd | 1/16 = 6,25% |
“1/16” chỉ là xác suất mỗi con trong mô hình. Với 16 con, xác suất thấy ít nhất một con kép là 1 − (15/16)^16 ≈ 64,4%; vẫn còn khoảng 35,6% khả năng chưa thấy con kép dù M1 đúng. Vì vậy vài lứa nhỏ không đủ để tuyên bố “không có gene kép”.
5. Mô hình M2: Bông che phần Nâu
Nếu Bông là vùng mất sắc tố lớn, ss dd có thể vẫn nhìn như Bông vì vùng cần đánh giá Nâu không còn sắc tố. Hai kiểu gene ss D_ và ss dd bị gộp thành cùng nhãn nhìn thấy. Khi đó bảng 9:3:3:1 trở thành:
| Nhãn quan sát | Gộp từ | Tỷ lệ kỳ vọng |
|---|---|---|
| Bình thường | S_ D_ | 9/16 |
| Nâu | S_ dd | 3/16 |
| Bông nhìn thấy | ss D_ + ss dd | 4/16 = 25% |
| Bông + Nâu nhìn thấy | không tách được ổn định | gần 0 hoặc thấp |
Đây là lý do phải chấm white_area_ratio và brown_shift_in_crest/wing/tail riêng. Bông khu trú không nhất thiết che toàn bộ Nâu; hai con cùng nhãn Bông có thể khác hẳn vùng lông còn sắc tố. Không được dùng việc “chưa thấy con kép” làm bằng chứng bác bỏ Nâu.
6. Mô hình M3: Nâu lặn liên kết nhiễm sắc thể Z
Chim trống là ZZ, mái là ZW. Trong mô hình minh họa, Nâu là allele m trên Z; Bông vẫn được đặt ở locus thường để so sánh. Hai chiều lai có thể khác nhau:
Một phép lai thuận–nghịch lặp lại ở nhiều gia đình, trong đó Nâu tập trung ở mái theo đúng chiều, là tín hiệu để ưu tiên kiểm tra M3. Nó vẫn chưa phải xác nhận gene. Nếu không ghi giới tính, tổng F2 đôi khi vẫn trông giống 9:3:3:1 và làm người đọc chọn nhầm M1.
7. Bảng so sánh ba mô hình và đối chứng M0
| Câu hỏi kiểm tra | M1: lặn thường độc lập | M2: Bông che Nâu | M3: Nâu lặn liên kết Z | M0: không di truyền ổn định |
|---|---|---|---|---|
| F1 hai chiều | thường bình thường | thường bình thường | có thể khác theo chiều và giới | không ổn định, phụ thuộc tuổi/ảnh |
| F2 không tách giới | gần 9:3:3:1 | gần 9:3:4 | tổng có thể giống M1 | không có tỷ lệ Mendel bền |
| F2 tách giới | Nâu ở cả hai giới | che theo vùng, không nhất thiết lệch giới | Nâu lệch rõ theo giới/chiều | lệch không tái lập |
| Con kép | khoảng 1/16 nếu quan sát được | bị gộp vào Bông | phụ thuộc chiều lai và genotype Z | không dự đoán được |
| Dữ liệu phân biệt mạnh nhất | nhiều gia đình + F2 đủ lớn | đo vùng còn sắc tố, ảnh sau thay lông | hai chiều lai + sex DNA | timeline, ảnh chuẩn hóa, loại trừ chấn thương |
| Câu được phép nói | “phù hợp hơn trong tập mô hình” | “có tín hiệu che lấp” | “ưu tiên kiểm tra liên kết Z” | “chưa thấy phân ly ổn định” |
M4 liên kết hai locus, M5 độ thấm không hoàn toàn và M6 nhiều allele/modifier là các mở rộng tiếp theo. Chúng không bị xóa; chỉ không nên dùng để làm bảng chính quá khó đọc.
8. Cách ghi ảnh và chấm phenotype mới
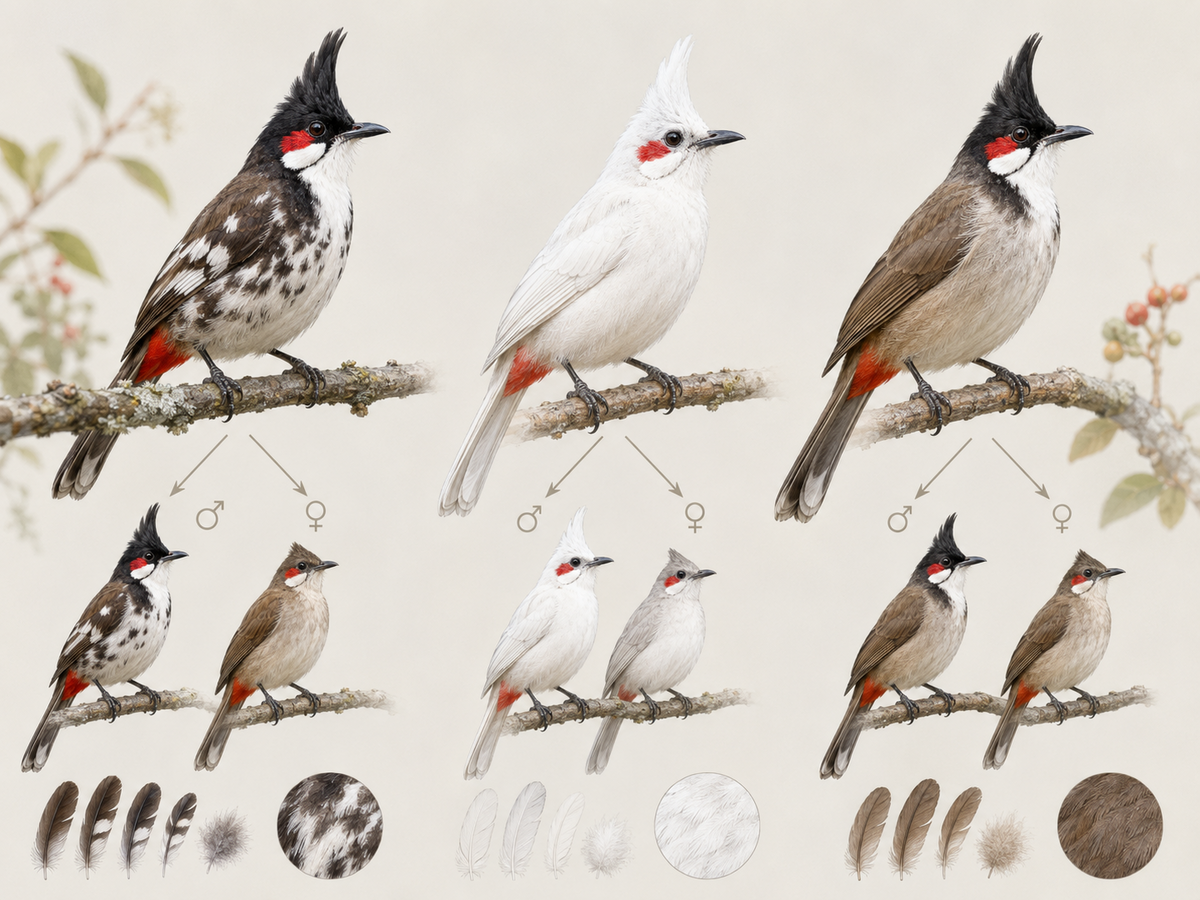
Ảnh dùng cho phân tích màu nên có nền, khoảng cách, góc chụp, nhiệt độ màu và thẻ xám cố định. Quy trình 2024 của Houle và cộng sự gợi ý trích RGB từ vùng chuẩn, tuyến tính hóa, chọn ROI và đo tỷ lệ màu; có thể chuyển thành quy trình thực địa đơn giản hơn cho người nuôi.
Mỗi lần chấm lưu các trường:
Không chấm một lần duy nhất. Mốc khuyến nghị là T0 (đủ lông non), T1 (trước thay lông đầu), T2 (sau thay lông đầu), T3 (trưởng thành) và T4 nếu còn tranh chấp. F2-UNK là nhãn hợp lệ, không phải dữ liệu phải ép vào bốn nhóm để bảng “đẹp”.
9. Bảng theo dõi từng lứa: giữ cả con không màu
Một dòng cho mỗi lứa và một dòng cho mỗi chim con. Bảng tối thiểu:
| Trường | Ví dụ | Vì sao cần |
|---|---|---|
| pairing_id, family_id, clutch_id | CM-MAT-001, CM-CLU-001 | Không trộn nhiều cặp |
| egg_count, fertile_egg_count | 4, 3 | Tách vô sinh khỏi chết phôi |
| embryo_loss_count, hatched_count | 1, 2 | Không chỉ nhìn con sống |
| survived_to_first_molt, survived_to_adult | 2, 1 | Kiểm tra sai lệch sống sót |
| offspring_id, father_id, mother_id | CM-F2-0042 | Truy ngược phả hệ |
| sex, sex_method, sex_confidence | female, DNA, 0.99 | Kiểm tra M3 |
| phenotype_T0/T1/T2/final | F2-DBL, F2-UNK | Không xóa lịch sử |
| image_ids, reviewer_1/2 | IMG-… | Kiểm tra người chấm |
| health_notes, survival_status | bình thường, sống | Màu không override phúc lợi |
Nếu chỉ còn một lứa 8 con sống đến trưởng thành, đó là mẫu quan sát có chọn lọc, không phải mẫu số 8 hoàn chỉnh. Khi báo tỷ lệ, nêu rõ mẫu số đang là trứng, con nở, con sống đến T2 hay con trưởng thành.
10. Đọc kết quả F1–F2 mà không nhảy quá cấp bằng chứng
- Hai chiều F1 đều bình thường: phù hợp với M1, nhưng chưa loại M2, linkage, độ thấm thấp hay M3 chưa lộ tín hiệu.
- Chỉ mái F1 của chiều trống Nâu × mái Bông có Nâu: M3 được ưu tiên kiểm tra; cần lặp ở gia đình độc lập và xác định giới tính bằng DNA.
- F2 gần 9:3:3:1, Nâu ở cả hai giới: M1 phù hợp hơn trong tập mô hình đã thử; vẫn phải kiểm tra family effect, parentage và sống sót.
- F2 gần 9:3:4, gần như không thấy kép: M2 là lời giải thích ứng viên; linkage, chấm thiếu vùng sắc tố và tử vong chọn lọc vẫn chưa bị loại.
- Bông tăng theo tuổi hoặc chỉ xuất hiện sau tổn thương: ưu tiên M0/tiến triển theo tuổi trước khi dùng Mendel.
Đây là ngôn ngữ đúng: “Dữ liệu hiện phù hợp hơn với mô hình X trong tập mô hình đã kiểm tra.” Ngôn ngữ sai là: “Đã chứng minh gene Bông là s” hoặc “ghép là chắc chắn ra 6,25% con kép”.
13. FAQ ngắn
Ghép chào mào Bông với Nâu có chắc ra con Bông + Nâu không?
Không. Trong mô hình hai locus lặn độc lập, F1 dự kiến bình thường và F2 có lớp kép 1/16; ngoài đời còn có che lấp, linkage, độ thấm, sai chấm màu và sống sót.
Không thấy con kép sau 16 con có nghĩa là không mang tính trạng?
Không. Ngay khi xác suất lý thuyết là 1/16, xác suất chưa thấy con kép sau 16 con vẫn khoảng 35,6%.
Có thể gọi Bông là EDNRB2, Nâu là TYRP1 không?
Không. Các gene đó là ví dụ từ loài khác; chúng chỉ giúp tạo giả thuyết nghiên cứu. Chào mào cần dữ liệu riêng.
Có cần đo giới tính từng con không?
Có nếu muốn kiểm tra mô hình liên kết Z. Ngoại hình không đủ tin cậy; hãy ghi phương pháp và độ tin cậy, không điền “trống/mái” theo cảm giác.
Chọn cặp nào để ra màu nhanh nhất?
Không có công thức an toàn chỉ dựa trên màu. Ưu tiên sức khỏe, phúc lợi, phả hệ không cận huyết và giá trị thông tin của phép lai; mọi ghép thật đều cần human review.
Kết luận
Bông × Nâu đáng nghiên cứu vì buộc người nuôi trả lời đúng ba câu hỏi: kiểu hình đã được khóa nghĩa chưa, F1–F2 có phân ly lặp lại không, và mô hình cạnh tranh nào giải thích dữ liệu tốt hơn. M1 9:3:3:1 là điểm khởi đầu dễ tính; M2 9:3:4 nhắc rằng Bông có thể che Nâu; M3 nhắc phải làm lai thuận–nghịch và ghi giới tính. Giá trị của bài không nằm ở việc hứa ra một màu, mà ở việc tạo bộ dữ liệu đủ sạch để bác bỏ giả thuyết sai mà không hy sinh sức khỏe đàn chim.
Nguồn tham khảo chính
1. Maclary & Shapiro (2025), Molecular Biology and Evolution, DOI 10.1093/molbev/msaf267 — biến thiên EDNRB2 ở nhiều loài chim; không suy gene chéo loài. 2. Houle et al. (2024), MethodsX, DOI 10.1016/j.mex.2024.102648 — chuẩn hóa ảnh và đo màu bằng ROI. 3. Yimtragool et al. (2022), LAMP sex identification in red-whiskered bulbul, PMC9534725 — CHD-Z/CHD-W và giới hạn phương pháp. 4. Minvielle et al. (2005), Japanese quail mutations, DOI 10.1186/1471-2156-6-14 — ví dụ thiết kế F1–F2 hai tính trạng; không phải bằng chứng trực tiếp cho chào mào. 5. Domyan et al. (2014), pigeon pigment epistasis, DOI 10.1016/j.cub.2014.01.020 — ví dụ tương tác pigment ở loài khác. 6. Hemmings et al. (2012), inbreeding and early death in a passerine, DOI 10.1038/ncomms1870 — lý do phải ghi sống sót và tránh ghép cận huyết.
Tuyên bố phạm vi: Bài này là bản mô phỏng/thiết kế nghiên cứu. Chưa có locus Bông hoặc Nâu nào được xác nhận trực tiếp ở Pycnonotus jocosus. Không dùng bài để tự quyết định ghép, điều trị hay lấy mẫu xâm lấn.
Trong quá trình thực hiện các phép lai ngược để cố định sắc lông đột biến, nghệ nhân cần dựa trên nền tảng khoa học giải thích lý do chim mái biểu hiện màu nâu theo nhiễm sắc thể Z nhằm dự đoán chính xác tỷ lệ phân ly ở các lứa ấp.