
Trong một buổi cà phê chim đầu tuần, một người nuôi đưa điện thoại lên khoe: “Con này gene Bông, chuẩn không cần chỉnh.” Trên màn hình chỉ là một tấm ảnh — con chim có vài mảng lông trắng loang ở cánh. Không ai trong nhóm hỏi lại: đã ghép thử chưa, đã có đời con chưa, đã ghi giới tính chưa. Ba tuần sau, con chim đó được bán với giá gấp ba vì “có gene”, và người mua tin ngay vì nghe đúng một từ nghe như đã có xét nghiệm xác nhận — dù thực ra chưa ai xác nhận điều gì cả.
Đây là cái giá của việc dùng sai một chữ: gọi phenotype (cái nhìn thấy trên con chim) thành genotype hay thẳng ra là “gene” (cái chưa ai xác nhận ở chào mào), biến một tấm ảnh thành một lời cam kết khoa học không có thật. Bài này giải nghĩa 20 thuật ngữ di truyền màu lông chào mào người nuôi hay dùng sai, kèm ví dụ, chỗ hay nhầm và hệ quả cụ thể.
Bấm Thêm để Google ưu tiên hiện bài chăm chim của TAICHEL cho bạn.
1. Vì sao một chữ dùng sai làm hỏng cả một vụ ghép
Câu chuyện trên không hiếm. Trong cộng đồng nuôi chào mào tập ghép màu, các thuật ngữ di truyền học — vốn được đặt ra để mô tả chính xác từng lớp bằng chứng khác nhau — bị gộp chung thành một mớ từ nghe “có vẻ khoa học”. Hệ quả không chỉ dừng ở việc trả giá cao cho một con chim, mà còn ở việc người nuôi tự đánh lừa chính mình: ghép sai kỳ vọng, bỏ dở một dự án đúng lúc dữ liệu quan trọng nhất sắp xuất hiện, hoặc công bố một kết luận mà chính công cụ phân tích cũng từ chối xác nhận.
20 thuật ngữ dưới đây chia thành 4 nhóm theo đúng trình tự một người nuôi sẽ gặp: trước tiên là phân biệt cái nhìn thấy với cái chưa biết (kiểu hình vs kiểu gene), sau đó là cách gọi tên các thế hệ khi lên kế hoạch ghép, tiếp đến là nhóm khái niệm hay bị đọc ngược nhất — liên kết và giới tính — và cuối cùng là cách đọc đúng một báo cáo phân tích thay vì đoán mò con số.
2. Nhóm 1 — Kiểu hình vs kiểu gene: 5 thuật ngữ nền tảng
Đây là ranh giới quan trọng nhất và cũng là ranh giới bị xoá nhoà nhiều nhất: cái bạn nhìn thấy trên con chim, và cái bạn chưa biết nằm trong tế bào.
Phenotype (kiểu hình)
Là những gì bạn quan sát được thật trên con chim — màu lông, vị trí mảng loang, sắc má. Ví dụ: một con có mảng lông trắng ở cánh và đầu là phenotype “giống Bông” — đây là cái bạn nhìn được, không phải cái bạn biết chắc bên trong (xem thêm định nghĩa phổ thông về kiểu hình (phenotype)). Hay bị nhầm: gọi thẳng phenotype bằng tên “gene” chỉ vì nhìn một tấm ảnh. Hệ quả: đẩy giá con chim lên vì một từ nghe chắc chắn hơn thực tế, trong khi phenotype có thể do nhiều nguyên nhân khác ngoài di truyền — bài chào mào Bông có che màu Nâu không đã chỉ ra một phần của vấn đề này.
Genotype (kiểu gene)
Là tổ hợp allele con chim mang trong tế bào — thứ mắt thường không thấy được, và hiện chưa có xét nghiệm DNA thương mại nào xác nhận cho màu lông chào mào. Ví dụ: hai con cùng phenotype “bình thường” vẫn có thể mang genotype khác nhau — một con thuần chủng, một con mang allele lặn ẩn (carrier) không biểu hiện ra ngoài. Hay bị nhầm: đoán genotype chỉ từ một tấm ảnh hoặc một thế hệ duy nhất. Hệ quả: ghép nhầm cặp tưởng “chắc kèo” ra màu hiếm nhưng genotype thực tế không như kỳ vọng, mất trắng cả một mùa sinh sản.
Allele
Là một trong các phiên bản khác nhau của cùng một vị trí gene (locus). Ví dụ: trong mô hình làm việc, ký hiệu S/s được dùng cho locus liên quan Bông và D/d cho locus liên quan Nâu — nhưng đây là ký hiệu allele trong một mô hình toán học, không phải tên gene sinh học đã xác nhận ở chào mào. Hay bị nhầm: nói “allele Bông” và “gene Bông” như một khái niệm, hoặc coi ký hiệu S/s là tên gene thật. Hệ quả: biến một ký hiệu mô hình thành một tuyên bố khoa học chưa có cơ sở khi có ai hỏi “gene gì vậy”.
Locus
Là vị trí cụ thể trên một nhiễm sắc thể nơi một gene hoặc allele nằm ở đó. Ví dụ: mô hình làm việc giả định có locus “Bông” và locus “Nâu” là hai vị trí khác nhau, độc lập hoặc liên kết tuỳ mô hình đang xét. Hay bị nhầm: nghĩ “hai màu khác nhau chắc chắn là hai locus độc lập” — thực tế cần dữ liệu lai mới phân biệt được, như cách bài AI dự đoán màu lông chào mào bằng lai đã trình bày. Hệ quả: bỏ qua khả năng liên kết gene khiến dự đoán tỷ lệ con kép sai lệch nghiêm trọng.
Trội/lặn
Trội là allele biểu hiện ra ngoài dù chỉ có một bản sao; lặn chỉ biểu hiện khi có đủ hai bản sao giống nhau. Ví dụ: trong mô hình làm việc, Bông và Nâu được giả định là lặn thường — F1 (đời lai đầu) mang một bản sao allele lặn vẫn biểu hiện bình thường, “giấu” đặc điểm đó cho tới F2. Hay bị nhầm: nói “chim bố mẹ bình thường thì chắc chắn con cũng bình thường”. Hệ quả: bỏ lỡ khả năng cả hai bố mẹ đều là carrier mang ẩn allele lặn, dẫn tới bất ngờ ở lứa F2 mà người nuôi tưởng là “đột biến ngẫu nhiên”.
3. Nhóm 2 — Thiết kế ghép: 5 thuật ngữ khi lên kế hoạch lai
Nhóm này gọi tên các thế hệ và các phép ghép trong một dự án theo dõi có kế hoạch — không phải cách gọi tuỳ hứng cho bất kỳ cặp chim nào.
P (thế hệ bố mẹ)
Là cặp chim gốc được chọn ghép đầu tiên trong một dự án theo dõi có kế hoạch. Ví dụ: một trống phenotype Bông ghép với một mái phenotype Nâu được gọi là thế hệ P của phép lai đó. Hay bị nhầm: gọi bất kỳ cặp bố mẹ nào cũng là “P” kể cả khi không có kế hoạch ghi chép hay chấm phenotype từ trước — dùng ngay form theo dõi chào mào Bông Nâu F1-F2 từ lứa P đầu tiên sẽ tránh được lỗi này. Hệ quả: dữ liệu không có điểm khởi đầu rõ ràng để so sánh về sau, mọi kết luận từ F1/F2 sau này mất căn cứ.
F1 (đời lai thứ nhất)
Là đời con trực tiếp của cặp P. Ví dụ: trong mô hình làm việc Bông × Nâu, F1 được giả định 100% mang phenotype bình thường — không lộ Bông hay Nâu — vì cả hai đặc điểm được giả định lặn. Hay bị nhầm: thấy F1 “bình thường” liền kết luận “vậy là hết gene rồi, ghép hỏng”. Hệ quả: bỏ dở dự án đúng lúc dữ liệu quan trọng nhất — F1 ghép F1 ra F2 — chưa kịp thu thập.
F2 (đời lai thứ hai)
Là đời con của F1 ghép với F1 (hoặc chị em/anh em cùng lứa, cần cân nhắc phúc lợi cận huyết trước khi làm). Ví dụ số liệu chạy thật: bài F2 chào mào bao nhiêu con thì đủ chỉ ra rằng với mô hình 1/16 xác suất con kép, 16 con F2 vẫn còn tới 35,61% khả năng chưa thấy con kép nào dù mô hình hoàn toàn đúng; cần khoảng 47 con F2 hợp lệ để đạt gần 95% cơ hội. Hay bị nhầm: ghép được một lứa F2 nhỏ (5–8 con), không thấy màu hiếm liền kết luận “mô hình sai” hoặc “chim này không mang gene”. Hệ quả: dừng thí nghiệm quá sớm, huỷ bỏ một dòng ghép tiềm năng chỉ vì cỡ mẫu chưa đủ.
Lai thuận/nghịch
Lai thuận là chiều ghép trống mang đặc điểm A × mái mang đặc điểm B; lai nghịch là đảo ngược — trống mang B × mái mang A. Ví dụ: bài chào mào mái màu Nâu, trống thì không cho thấy hai chiều ghép có thể cho kết quả khác nhau khi một đặc điểm liên kết với nhiễm sắc thể giới tính Z. Hay bị nhầm: chỉ ghép một chiều rồi coi kết quả đại diện cho toàn bộ cặp allele, không thử chiều ngược lại. Hệ quả: bỏ lỡ đúng tín hiệu quan trọng nhất để phân biệt mô hình liên kết giới tính với mô hình lặn thường thông thường.
Backcross (lai trở lại)
Là ghép đời con (thường là F1) trở lại với chính bố hoặc mẹ của nó, để kiểm tra kiểu gene ẩn. Ví dụ: ghép F1 trở lại với chim P thể lặn là cách kiểm tra được dùng trong các thiết kế lai bài bản để xác nhận F1 có mang allele ẩn hay không. Hay bị nhầm: coi backcross là bước “phụ”, không cần thiết nếu F2 đã khớp tỷ lệ đẹp. Hệ quả: bỏ lỡ công cụ mạnh nhất để nâng mức bằng chứng lên G4 — mức đòi hỏi có testcross và phả hệ nhiều thế hệ.
4. Nhóm 3 — Liên kết & giới tính: 5 thuật ngữ hay bị đọc ngược
Đây là nhóm dễ gây hiểu lầm nhất, vì ở chim hệ nhiễm sắc thể giới tính đảo ngược so với con người — và vì một con số tổng gộp có thể che giấu đúng tín hiệu quan trọng nhất.
Nhiễm sắc thể Z/W
Ở chim, hệ nhiễm sắc thể giới tính đảo ngược so với động vật có vú: chim trống là ZZ (hai bản Z), chim mái là ZW (một Z, một W). Ví dụ: nếu một đặc điểm màu nằm trên nhiễm sắc thể Z, chim mái (chỉ có một Z) dễ biểu hiện đặc điểm đó hơn chim trống (có hai Z, một bản có thể che allele lặn ở bản kia) — muốn biết chắc cần xác minh giới tính chào mào bằng DNA, bằng lai liên kết Z. Hay bị nhầm: áp công thức di truyền liên kết giới tính kiểu người (XY) vào chim mà không đảo ngược logic trống/mái. Hệ quả: đọc sai chiều biểu hiện — dự đoán nhầm bên nào (trống hay mái) sẽ mang màu rõ hơn.
Liên kết giới tính (sex-linked)
Là một đặc điểm nằm trên nhiễm sắc thể giới tính (ở chim là Z), khiến kiểu biểu hiện khác nhau giữa trống và mái. Ví dụ số liệu chạy thật: một bộ dữ liệu cho tỷ lệ biểu hiện Nâu ở trống là 0%, ở mái là 50% — chênh lệch 0,5, vượt xa ngưỡng cảnh báo 0,25, khiến công cụ gắn cờ “tín hiệu liên kết giới tính mạnh”. Hay bị nhầm: viết thẳng “màu này liên kết giới tính” như một kết luận đã đóng. Hệ quả: câu đúng theo luật của tài liệu là “mô hình liên kết Z được ưu tiên kiểm tra” — không phải kết luận cuối cùng, vì cần thêm lai thuận-nghịch và giới tính đời con để xác nhận.
Liên kết gene (gene linkage)
Là hiện tượng hai locus nằm gần nhau trên cùng một nhiễm sắc thể, có xu hướng di truyền cùng nhau thay vì phân ly độc lập. Ví dụ số liệu chạy thật: trong một lô 440 con F2, chỉ 2 con mang kiểu hình kép (0,45%) thay vì khoảng 6,25% như mô hình hai locus độc lập dự đoán — khớp với mô hình gene liên kết chào mào ở pha đối, fit ra tần số tái tổ hợp r = 0,125. Hay bị nhầm: thấy thiếu con kép liền kết luận ngay “hai gene liên kết”, bỏ qua các khả năng khác. Hệ quả: tài liệu liệt kê ít nhất sáu khả năng cạnh tranh khi thiếu lớp kép (liên kết pha đối, Bông che Nâu, lớp kép giảm sống sót, cỡ mẫu nhỏ, chấm phenotype sai, giả định hai locus không đúng) — chọn vội một cách giải thích là bỏ sót năm khả năng còn lại.
Tần số tái tổ hợp r
Là xác suất xảy ra một sự kiện trao đổi chéo giữa hai locus liên kết khi tạo giao tử, giá trị từ 0 (liên kết chặt tuyệt đối) đến 0,5 (coi như độc lập). Ví dụ: cùng giá trị r = 0,1, nhưng pha đối (repulsion) cho ra khoảng 0,25% con kép trong khi pha cùng (coupling) cho ra khoảng 20,25% con kép — chênh nhau khoảng 81 lần dù cùng một giá trị r. Hay bị nhầm: coi r là hằng số biết trước, hoặc bỏ qua nó khi ước tính số con kép kỳ vọng. Hệ quả: dự đoán sai hoàn toàn số con kép kỳ vọng, đặc biệt khi nhầm pha cùng với pha đối.
Pha cùng/pha đối (coupling/repulsion)
Mô tả cách hai allele lặn của F1 dị hợp nằm trên cùng một nhiễm sắc thể (pha cùng — hai allele “màu” đi cùng nhau) hay khác nhiễm sắc thể (pha đối — mỗi nhiễm sắc thể mang một allele “màu”). Ví dụ: một F1 pha đối có xác suất sinh giao tử mang cả hai allele lặn là (r/2)², thấp hơn nhiều so với F1 pha cùng. Hay bị nhầm: mặc định luôn là pha cùng vì “nghe hợp lý hơn”. Hệ quả: tính sai xác suất con kép theo hướng lạc quan quá mức, dẫn tới kỳ vọng sai về số lượng con cần ghép để thấy được lớp kép.
5. Nhóm 4 — Đọc kết quả: 5 thuật ngữ khi nhận báo cáo phân tích
Nhóm cuối cùng là nơi nhiều người “cháy nhất” — nghe một con số trong báo cáo phân tích rồi diễn dịch nó thành một điều mà con số đó chưa từng nói.
bic_weight
Là một con số so sánh mức độ phù hợp tương đối giữa các mô hình đã đưa vào so sánh, dưới cùng một bộ dữ liệu và giả định — không phải xác suất mô hình đó đúng trong thực tế. Ví dụ số liệu chạy thật: với một ca dữ liệu H1 “sạch” khớp gần như hoàn hảo tỷ lệ 9:3:3:1, mô hình thắng cũng chỉ đạt bic_weight 0,8588 chứ không phải 1,0, vì hai mô hình liên kết gene vẫn giữ khoảng 6,8% mỗi cái — chúng có thể fit ở tần số tái tổ hợp r=0,5 cho ra dự đoán gần giống hệt, chỉ bị phạt điểm vì thêm một tham số. Hay bị nhầm: đọc “bic_weight 0,90” thành “90% chắc chắn có gene này” — đây là câu bị cấm tuyệt đối trong tài liệu dự án. Hệ quả: bic_weight cao chỉ nói mô hình này thắng thế so với các mô hình khác đã đưa vào so sánh, không phải xác suất sinh học tuyệt đối.
Evidence grade G0–G6
Là thang mức bằng chứng cho một kết luận di truyền, từ G0 (dữ liệu không hợp lệ) tới G6 (cơ chế được xác nhận mạnh qua tái lập độc lập hoặc bằng chứng chức năng); công cụ không tự cấp G5/G6 vì hai mức này cần dữ liệu phân tử. Ví dụ số liệu chạy thật: một lô 64 con F2 khớp hoàn hảo tỷ lệ 9:3:3:1 chào mào nhưng không ghi giới tính và chiều ghép đã bị tụt từ G3 xuống G1 — mô hình liên kết Z bị từ chối chấm hoàn toàn vì thiếu metadata thiết kế. Mọi lượt phân tích của công cụ kết thúc bằng khối giới hạn nguyên văn: “limits”: {“biochemical_pigment_status”:”unconfirmed”,”gene_status”:”not_assessed”,”causal_variant_status”:”not_assessed”,”parent_genotype_status”:”not_confirmed”,”inheritance_status”:”candidate_model_only”,”breeding_instruction_status”:”not_an_automatic_breeding_order”}. Hay bị nhầm: nghĩ số con càng nhiều thì evidence grade càng cao, bất kể có ghi đủ giới tính/chiều ghép hay không. Hệ quả: đầu tư cả mùa sinh sản để có số lượng lớn nhưng bằng chứng vẫn ở mức thăm dò vì thiếu các trường bắt buộc.
Epistasis (một gene che một gene khác)
Là hiện tượng kiểu hình của một locus bị một locus khác “che” hoặc làm thay đổi biểu hiện. Ví dụ số liệu chạy thật: với dữ liệu F2 dạng 9:3:4 (không xuất hiện lớp “kép”), mô hình Bông che Nâu đạt bic_weight 0,9844 — nhưng cùng bộ dữ liệu đó, mô hình liên kết gene vẫn giữ 1,5%, vì liên kết chặt cũng có thể làm mất lớp kép theo cách khác. Hay bị nhầm: thấy thiếu lớp kép là kết luận ngay “chắc chắn Bông che Nâu” mà không xét khả năng liên kết gene. Hệ quả: chọn nhầm mô hình sinh học, dẫn tới kỳ vọng sai cho các lứa ghép sau.
Penetrance (độ thấm)
Là tỷ lệ cá thể mang kiểu gene phù hợp thực sự biểu hiện ra kiểu hình mong đợi; độ thấm không hoàn toàn nghĩa là một số cá thể mang gene nhưng không biểu hiện rõ. Ví dụ: một trong bảy mô hình được tài liệu liệt kê mô tả trường hợp thiếu hụt đều ở mọi lớp có màu — dấu hiệu gợi ý độ thấm không hoàn toàn, khác với tỷ lệ Mendel bị lệch do nguyên nhân khác. Hay bị nhầm: thấy một con “lẽ ra phải có màu” mà lại biểu hiện bình thường liền kết luận “người ghi chép trước sai” mà không xét khả năng độ thấm không hoàn toàn. Hệ quả: đổ lỗi sai cho khâu ghi chép trong khi vấn đề nằm ở bản chất sinh học của mô hình.
Cỡ mẫu (sample size)
Là số lượng cá thể quan sát được — yếu tố quyết định một mô hình có đủ căn cứ để phân biệt với mô hình cạnh tranh hay không. Ví dụ số liệu chạy thật: xác suất thấy ít nhất một con kép sau n con F2 (mô hình 1/16) là 40,33% ở n=8, 64,39% ở n=16, 78,75% ở n=24, 87,32% ở n=32 và 95,49% ở n=48; số con nhỏ nhất đạt khoảng 95% là 47 con F2 hợp lệ. Hay bị nhầm: nói “tỷ lệ 1/16 nên nuôi 16 con là ra” — sau 16 con vẫn còn tới 35,61% khả năng không thấy con kép nào dù mô hình đúng hoàn toàn. Hệ quả: dừng thí nghiệm quá sớm, kết luận nhầm “mô hình sai” trong khi chỉ là cỡ mẫu chưa đủ để mô hình đúng bộc lộ ra.
6. Phân biệt: cặp thuật ngữ hay bị dùng lẫn
Ngoài định nghĩa riêng từng thuật ngữ ở bốn nhóm trên, ba cặp dưới đây là chỗ người đọc dễ tự nhầm nhất — không phải vì không biết định nghĩa, mà vì hai khái niệm nghe gần giống nhau khi nói nhanh ngoài đời. Dùng đúng dấu hiệu nhận biết dưới đây để biết mình đang đứng ở phía nào của mỗi cặp.
Kiểu hình (phenotype) và kiểu gene (genotype). Dấu hiệu nhận biết: nếu câu sắp nói bắt đầu từ việc “nhìn là biết” hay dựa trên đúng một tấm ảnh, đó là phenotype, dù miệng có buột ra chữ “gene”. Chỉ khi câu nói dựa trên dữ liệu ghép qua ít nhất một thế hệ, có ghi đời con theo giới tính, mới đang tiến gần genotype — và ngay cả khi đó, ở chào mào vẫn chưa có locus nào được xác nhận trực tiếp để gọi thẳng “gene X”.
Liên kết giới tính (sex-linked) và liên kết gene (gene linkage). Dấu hiệu nhận biết: nếu điều đang thấy khác nhau giữa trống và mái — ví dụ mái biểu hiện màu, trống thì không — đó là dấu hiệu của liên kết giới tính (nhiễm sắc thể Z). Nếu điều đang thấy là thiếu hẳn một lớp kiểu hình kép dù trống và mái có tỷ lệ như nhau, đó là dấu hiệu gần với liên kết gene — hai locus nằm gần nhau, không phân ly độc lập, không liên quan tới giới tính. Nhầm hai cái này thường xảy ra khi chỉ nhìn tổng số con mà chưa tách riêng theo giới tính.
bic_weight và xác suất. Dấu hiệu nhận biết: nếu con số đang đọc trả lời câu “mô hình nào trong nhóm đang so sánh được ủng hộ hơn, dưới cùng một bộ dữ liệu và giả định”, đó là bic_weight. Nếu con số trả lời câu “khả năng một sự kiện sinh học cụ thể xảy ra là bao nhiêu phần trăm” — như xác suất thấy con kép sau n con F2 — đó mới là xác suất thật. bic_weight cao không cộng dồn thành xác suất gene tồn tại; hai loại con số này không đổi chỗ cho nhau được, dù cùng xuất hiện trong một báo cáo phân tích.
7. Nói thế này thì sai — nói thế này mới đúng
Bảng dưới đây gom 20 câu người nuôi hay nói thật ngoài đời — và câu nên nói thay vào đó, dựa đúng trên các thuật ngữ vừa giải nghĩa ở trên.
| Nói thế này thì sai | Nói thế này mới đúng |
|---|---|
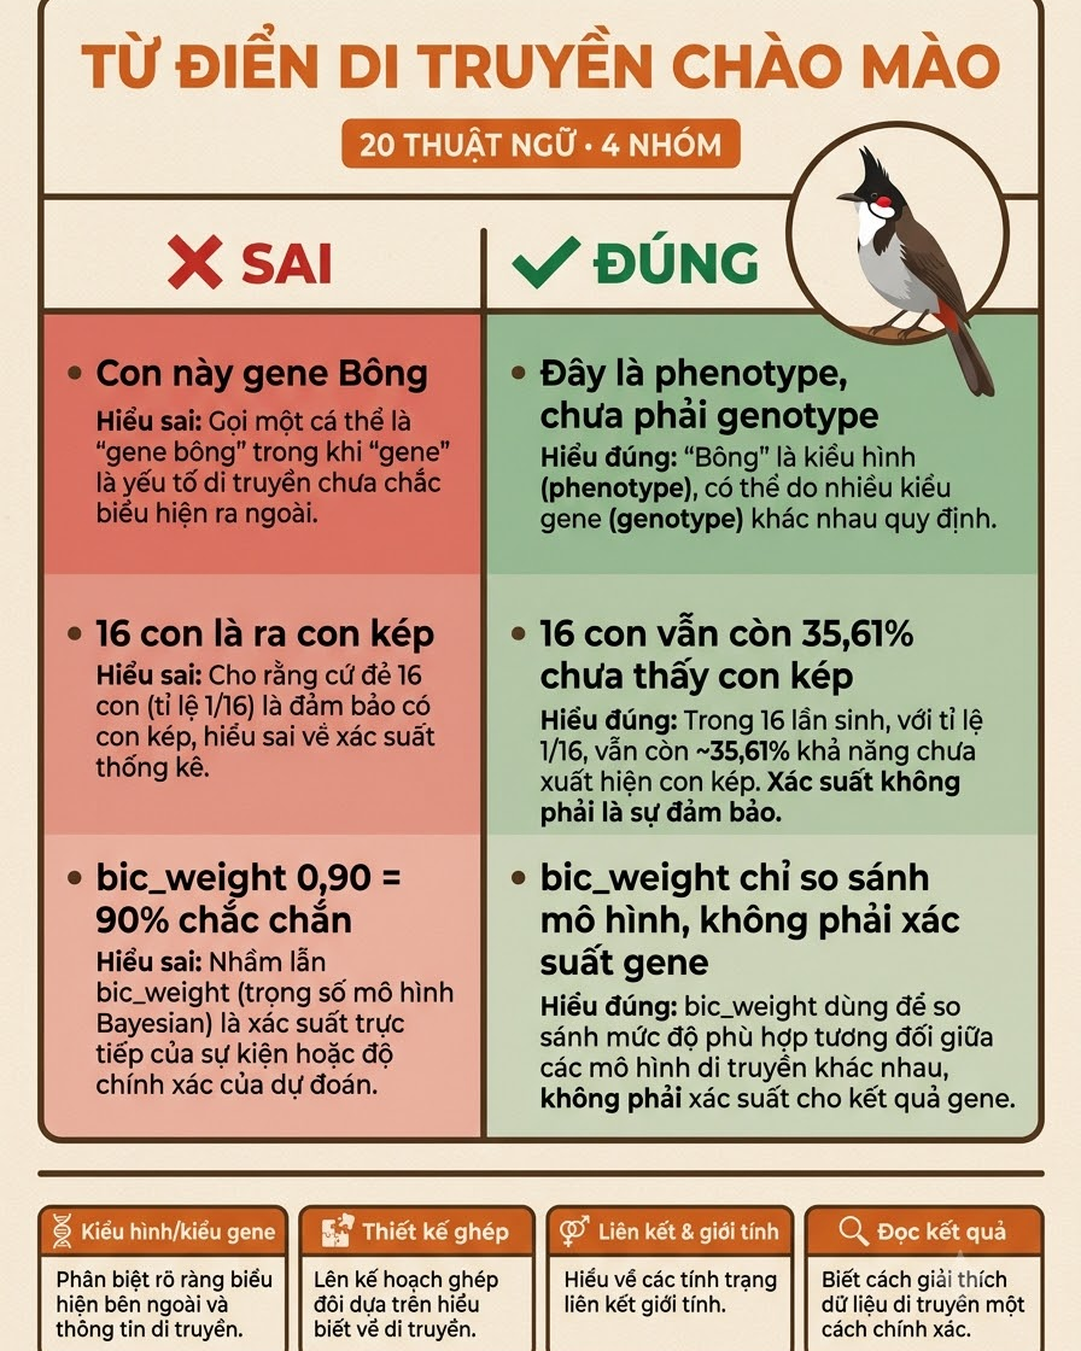
| “Con này gene Bông” (chỉ nhìn ảnh) | “Con này có phenotype giống Bông; genotype thì chưa xác định được chỉ từ ảnh” |
| “Tỷ lệ 1/16 nên nuôi 16 con là ra” | “Ghép 16 con F2 vẫn còn 35,61% khả năng chưa thấy con kép nào; cần khoảng 47 con F2 hợp lệ để đạt gần 95% cơ hội” |
| “bic_weight 0,90 nghĩa là 90% chắc chắn có gene này” | “bic_weight 0,90 là mức hỗ trợ tương đối giữa các mô hình đã chấm bằng BIC, dưới cùng một bộ dữ liệu và giả định — không phải xác suất gene tồn tại hay genotype đã được xác nhận” |
| “Nâu chắc chắn do TYRP1” | “SLC45A2 và CDKN2A là gene ứng viên liên quan tới kiểu lông tương tự ở gà (Li và cs., 2023) — nghiên cứu trên gà, chưa xác nhận ở chào mào” |
| “Không thấy con kép nên hai gene liên kết” | “Thiếu lớp kép còn ít nhất năm giải thích khác — liên kết pha đối chỉ là một trong số đó” |
| “F1 toàn bình thường nghĩa là hết gene rồi” | “F1 bình thường đúng như mô hình lặn thường dự đoán; allele ẩn chỉ lộ ra ở F2” |
| “Màu này liên kết giới tính” (kết luận chắc) | “Mô hình liên kết Z được ưu tiên kiểm tra, cần lai thuận-nghịch và giới tính đời con xác nhận thêm” |
| “Đếm đúng tỷ lệ 9:3:3:1 là xác nhận được mô hình” | “9:3:3:1 gộp giới cũng có thể là mô hình liên kết Z bị che khuất; phải tách riêng trống/mái mới biết” |
| “Đã xác nhận gene Bông ở chào mào” | “Chưa có locus Bông hoặc Nâu nào được xác nhận trực tiếp ở chào mào; đang ở mức mô hình ứng viên” |
| “Ghép Bông với Nâu chắc chắn F2 ra 6,25% con kép” | “6,25% là xác suất kỳ vọng theo mô hình lặn thường độc lập, không phải con số bảo đảm cho một lứa nhỏ cụ thể” |
| “Chỉ ghép một chiều là đủ, không cần đảo lại” | “Lai thuận và lai nghịch có thể cho kết quả khác nhau khi có yếu tố liên kết giới tính; cần thử cả hai chiều” |
| “Bố mẹ bình thường thì con chắc chắn cũng bình thường” | “Cả hai bố mẹ có thể là carrier mang allele lặn ẩn mà không biểu hiện ra ngoài” |
| “Không ghi giới tính cũng không sao, số vẫn đúng tỷ lệ” | “Thiếu giới tính từng khiến evidence grade tụt từ G3 xuống G1 và mô hình liên kết Z bị từ chối chấm” |
| “Genome đã giải mã rồi nên gene màu cũng xác nhận rồi” | “Genome assembly là tài nguyên tham chiếu, không phải bằng chứng gene màu đã xác nhận” |
| “Thiếu lớp kép là do Bông che Nâu” (kết luận ngay) | “Liên kết gene ở pha đối cũng có thể làm mất lớp kép; cần thêm dữ liệu để phân biệt hai khả năng” |
| “Allele S/s, D/d là tên gene thật” | “Đây chỉ là ký hiệu allele trong mô hình toán học, không phải tên gene sinh học đã xác nhận” |
| “Backcross không cần thiết nếu F2 đã khớp tỷ lệ đẹp” | “Backcross là công cụ mạnh để nâng evidence grade lên G4; tỷ lệ F2 đẹp một mình chưa đủ” |
| “Chim non mới nở đã chấm màu chuẩn được rồi” | “Chấm phenotype đáng tin cậy hơn sau khi thay lông đầu; chấm quá sớm dễ sai” |
| “Con lẽ ra có màu mà không có nghĩa là ghi sai” | “Có thể là độ thấm không hoàn toàn (penetrance), không nhất thiết do lỗi ghi chép” |
| “Công cụ báo G1/G2 nghĩa là kết quả sai” | “G1/G2 nghĩa là mô hình mới ở mức thăm dò/ứng viên vì thiếu dữ liệu, không phải kết quả sai — cần thêm lứa và metadata để nâng mức” |
Based on articles retrieved from PubMed, hai nguồn được dùng trong bảng và trong bài: Li R. và cs. (2023), Poultry Science 102(6):102665, PMID 37068355, DOI 10.1016/j.psj.2023.102665 — SLC45A2 và CDKN2A là gene ứng viên liên quan kiểu lông sub-Columbian ở gà, dựa trên quần thể F3, chưa phải kết luận đã xác nhận. Nghiên cứu này thực hiện trên gà, không phải trên chào mào, và kết quả không được suy trực tiếp sang loài khác.
8. Quy trình: dùng 20 chữ này khi nói chuyện với người bán, khi ghi chép lứa con
Hiểu đúng định nghĩa là một chuyện, dùng đúng lúc thật lại là chuyện khác. Năm bước ngắn dưới đây áp dụng cho hai tình huống hay gặp nhất: nghe người bán rao, và tự ghi chép lứa con của mình.
- Nghe xong, hỏi lại đúng một câu: “Đây là cái nhìn thấy (phenotype), hay đã có dữ liệu ghép (genotype)?” Nếu người bán chỉ đưa ảnh, câu trả lời luôn là phenotype, bất kể họ dùng chữ gì.
- Đổi từ “gene” sang đúng lớp bằng chứng khi ghi lại cho chính mình: viết “phenotype quan sát: lông loang trắng” thay vì chép nguyên văn “gene Bông” vào sổ hay tin nhắn lưu trữ, để tránh chính mình đọc lại sau này và tưởng đó là kết luận đã xác nhận.
- Khi bắt đầu một cặp ghép mới, mở ngay một dòng ghi chép P — mã cá thể, phenotype quan sát, ngày ghép — dùng đúng cấu trúc form ghi chép Bông Nâu F1-F2 ngay từ lứa P đầu tiên, thay vì nhớ trong đầu hoặc ghi rải rác nhiều nơi.
- Mỗi lứa con nở, ghi đủ ba trường bắt buộc trước khi ghi màu: giới tính (khi xác định được), chiều ghép (trống mang đặc điểm nào × mái mang đặc điểm nào), và thời điểm chấm phenotype (trước hay sau thay lông đầu). Thiếu một trong ba, dữ liệu vẫn dùng được nhưng evidence grade sẽ bị giới hạn ở mức thăm dò.
- Trước khi phát biểu một kết luận với người khác, kể cả trên mạng xã hội, tự hỏi lại bảng “Nói thế này thì sai — nói thế này mới đúng” ở trên: câu định nói đang nằm ở cột nào.
9. Khi nào bạn cần dừng lại trước khi buông một câu chắc nịch
Không phải lúc nào dùng đúng thuật ngữ cũng đủ — đôi khi vấn đề là bạn đang dùng đúng từ nhưng ở sai thời điểm, khi dữ liệu chưa đủ để rút ra kết luận đó. Bốn dấu hiệu sau đây là lúc nên dừng lại, ghi thêm dữ liệu, rồi mới nói tiếp:
- Bạn mới có ảnh hoặc một cặp bố mẹ, chưa có đời con theo giới tính — dừng ở mức “phenotype quan sát được”, chưa tới “mô hình di truyền”.
- Bạn có F2 nhưng cỡ mẫu dưới khoảng 47 con hợp lệ — một mô hình đúng vẫn có thể chưa “lộ” hết các lớp kiểu hình hiếm.
- Bạn chưa ghi giới tính hoặc chiều ghép — đừng vội chọn giữa mô hình lặn thường và mô hình liên kết Z, vì cả hai có thể cho cùng một con số tổng gộp.
- Công cụ phân tích trả về evidence grade G0–G2 hoặc trạng thái “không chấm được vì thiếu metadata” — đó là tín hiệu cần thêm lứa hoặc thêm trường dữ liệu, không phải để bạn tự suy diễn thay máy.
Trước khi chốt một câu chắc nịch về màu, xem cách đọc độ tin cậy bic_weight.
Đây không phải vì công cụ “chưa đủ thông minh” — đây là công cụ đang trung thực về ranh giới bằng chứng, luôn kết thúc mỗi lượt phân tích ở trạng thái gene_status: not_assessed, decision_support_only, human_review_required. Người dùng đúng thuật ngữ cũng cần trung thực với chính ranh giới đó, thay vì mượn một con số để nói chắc hơn mức dữ liệu cho phép.
10. Bài viết liên quan trong chuỗi kiến thức di truyền
Từ điển này là điểm khởi đầu của một chuỗi bài về đọc dữ liệu di truyền màu lông chào mào. Hai bài sau sẽ đi sâu vào cách áp dụng đúng các thuật ngữ trên vào việc ghi chép và tra cứu thực tế:
- Cách ghi chép phenotype chào mào theo mốc tuổi lông — cách ghi đúng các trường bắt buộc để phenotype bạn chấm không bị công cụ từ chối chấm điểm.
- BioBirdDNA — bản đồ toàn cụm bài kiến thức di truyền chào mào — nếu bạn chưa biết bắt đầu từ đâu trong toàn bộ chuỗi bài, trang này chỉ đúng thứ tự đọc.
11. Câu hỏi thường gặp
Vì sao không thể nói “con này gene Bông” chỉ vì nhìn ảnh đúng màu?
Vì ảnh chỉ cho biết phenotype — cái nhìn thấy. Gene (đúng hơn là locus/allele trong mô hình) là cái chưa quan sát được trực tiếp, và ở chào mào chưa có locus Bông hay Nâu nào được xác nhận trực tiếp. Muốn nói tới kiểu gene cần đi qua dữ liệu sinh sản: ghép, ghi đời con theo giới tính, rồi mới tới mô hình di truyền — không được nhảy thẳng từ ảnh sang gene.
bic_weight bao nhiêu thì được coi là “chắc chắn”?
Không có ngưỡng nào biến bic_weight thành “chắc chắn”. Đây là mức hỗ trợ tương đối giữa các mô hình đã chấm bằng BIC, dưới cùng một bộ dữ liệu và giả định — không phải xác suất sinh học tuyệt đối, và không phải xác suất gene tồn tại. Ngay cả một ca dữ liệu khớp gần như hoàn hảo tỷ lệ 9:3:3:1, mô hình thắng cũng chỉ đạt bic_weight 0,8588 chứ không phải 1,0, vì các mô hình liên kết gene vẫn giữ một phần trọng số.
Ghép 16 con F2 không thấy con kép nào thì có nên kết luận “không có gene liên kết”?
Chưa nên. Với mô hình xác suất 1/16 cho con kép, sau 16 con F2 vẫn còn tới 35,61% khả năng chưa thấy con kép nào dù mô hình hoàn toàn đúng. Muốn có khoảng 95% cơ hội thấy ít nhất một con kép, cần khoảng 47 con F2 hợp lệ — đã chấm sau thay lông, có ghi giới tính đầy đủ.
Evidence grade G1 với G3 khác nhau ở đâu, ngoài số con?
Khác ở loại dữ liệu, không chỉ số lượng. G1 là một cặp hoặc một lứa, mô hình còn ở mức thăm dò. G3 cần nhiều cặp độc lập, có lai thuận-nghịch, và ghi giới tính đầy đủ. Từng có trường hợp 64 con F2 khớp hoàn hảo tỷ lệ 9:3:3:1 nhưng thiếu giới tính và chiều ghép — evidence bị tụt từ G3 xuống G1 dù số con không hề ít.
12. Việc làm được ngay hôm nay
Không cần nhớ hết 20 thuật ngữ ngay hôm nay. Ba việc sau làm được luôn, không phải chờ tới lứa ghép tiếp theo:
- Mở lại tin nhắn hoặc bài đăng gần nhất có dùng chữ “gene” cho một con chim cụ thể — đối chiếu với dấu hiệu nhận biết ở mục “Phân biệt: cặp thuật ngữ hay bị dùng lẫn” phía trên, xem đó là phenotype hay genotype, rồi sửa lại cách gọi nếu cần.
- Nếu đang có một cặp ghép hoặc một lứa con chưa ghi chép đầy đủ, mở form ghi chép ngay hôm nay và điền đủ ba trường bắt buộc — giới tính, chiều ghép, thời điểm chấm phenotype — trước khi ghi thêm bất kỳ dòng màu nào.
- Lưu lại bảng “Nói thế này thì sai — nói thế này mới đúng” ở trên, dùng làm câu trả lời sẵn cho lần tới khi nghe ai đó nói “con này gene X, chắc chắn luôn”.
TAICHEL có hơn 20 năm đồng hành cùng người chơi chim. Dữ liệu số trong bài này lấy từ các lượt chạy thật của công cụ phân tích di truyền nội bộ BioBirdDNA (dữ liệu demo tổng hợp dùng để minh hoạ cách đọc kết quả), không phải đàn chim thật của một trại cụ thể nào.