
Bạn đứng trước lồng ghép, tay cầm cuốn sổ tay ghi chép cẩn thận, chuẩn bị tính tỷ lệ 9 3 3 1 chào mào cho đàn F2 vừa đủ lông. Trải qua một thời gian dài chờ đợi, theo dõi qua từng đợt sinh sản của chim bố mẹ, đàn chim F2 ra đời đạt tổng cộng 64 con. Bạn hồi hộp đếm từng đặc điểm màu lông của chim non và cẩn thận ghi nhận lại toàn bộ kết quả: 36 con mang kiểu hình bình thường, 12 con mang màu Nâu, 12 con mang màu Bông, và 4 con mang kiểu hình kép (kết hợp cả Bông và Nâu). Một sự trùng khớp đáng kinh ngạc, con số này vừa vặn tạo ra tỷ lệ 9 3 3 1 chào mào mà sách vở sinh học vẫn thường nhắc đến như một quy chuẩn vàng của di truyền học. Bạn mỉm cười đắc ý, tin chắc rằng mình đã nắm trọn trong tay mô hình di truyền của lứa chim này, sẵn sàng để công bố thành quả nhân giống. Thế nhưng, mọi niềm tin dường như sụp đổ khi bạn nhập dữ liệu vào công cụ phân tích sinh học và kết quả trả về lại dội một gáo nước lạnh: mức bằng chứng bị tụt xuống điểm thấp nhất, hệ thống hoàn toàn từ chối xếp hạng mô hình và liên tục yêu cầu bổ sung thông tin thiết kế lai. Nghịch lý vô lý này chính là câu chuyện mà rất nhiều người nuôi chim gặp phải khi họ chỉ tập trung vào những con số tổng gộp khổng lồ mà quên đi một chi tiết vô cùng nhỏ bé nhưng lại mang tính quyết định trong khoa học dữ liệu.
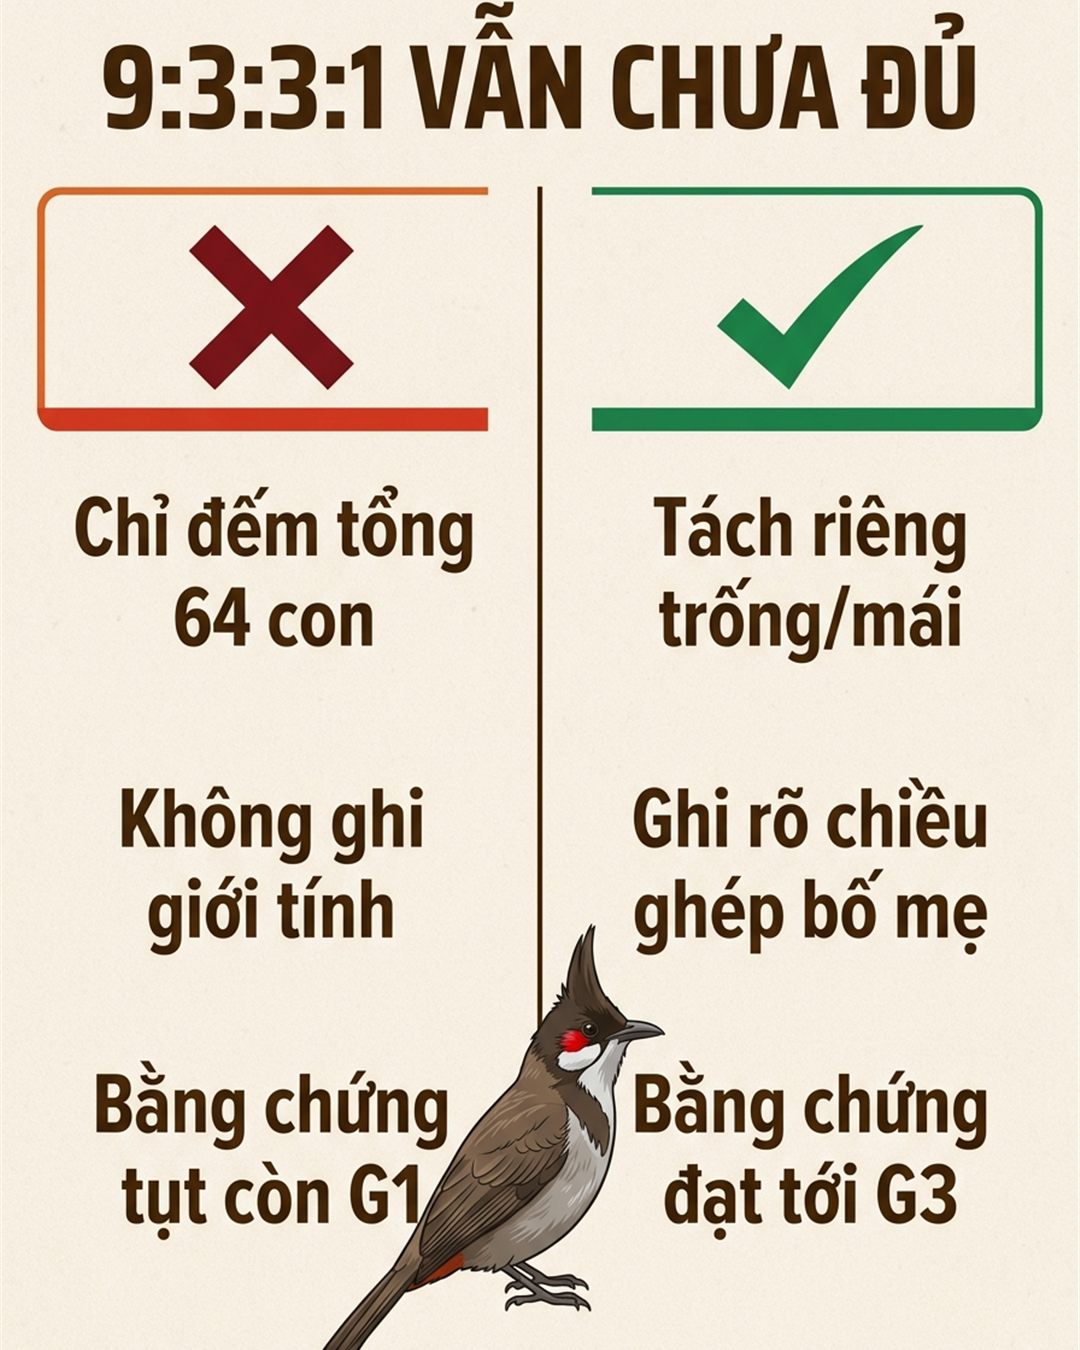
Dù bộ số 64 con F2 của bạn khớp hoàn hảo tỷ lệ 9 3 3 1 chào mào (36 bình thường, 12 Nâu, 12 Bông, 4 kép), công cụ vẫn đánh giá bằng chứng giảm từ G3 xuống G1, vì thiếu thông tin giới tính che khuất mô hình liên kết Z.
Bấm Thêm để Google ưu tiên hiện bài chăm chim của TAICHEL cho bạn.
1. Tình huống thực tế: Khi 64 con F2 khớp hoàn hảo tỷ lệ 9:3:3:1
Rất nhiều người nuôi đam mê ai dự đoán màu lông chào mào bằng lai và luôn đặt kỳ vọng khổng lồ vào những thế hệ đời sau. Giả định ban đầu trong các thử nghiệm ghép cặp thường được xây dựng rất lý tưởng. Hãy tưởng tượng bạn đang lên kế hoạch ghép thế hệ P với thiết kế làm việc cơ bản nhất: Một con Bông mang kiểu gen ss DD ghép với một con Nâu mang kiểu gen SS dd. Điều cực kỳ quan trọng cần phải ghi nhớ sâu sắc ở đây là S/s (locus Bông) và D/d (locus Nâu) KHÔNG phải tên gene — chúng chỉ là allele ký hiệu trong mô hình toán học nhằm giúp con người dễ dàng hình dung quy luật phân ly. Trên thực tế, ở loài chào mào (Pycnonotus jocosus), chưa có locus Bông hoặc Nâu nào được xác nhận trực tiếp về mặt phân tử hay giải mã, kể cả khi chúng ta có bản đồ genome tham chiếu GCA_013400435.1 vô cùng chi tiết.
Tiếp tục câu chuyện, đời F1 sinh ra từ cặp P này đạt 100% kiểu hình bình thường, mang trạng thái dị hợp tử Ss Dd. Mọi thứ dường như đang đi đúng quỹ đạo dự đoán. Khi bạn kiên nhẫn lấy lứa chim F1 này ghép chéo với nhau để tạo ra đời F2, và qua nhiều mùa ấp nở vất vả, bạn đã ghi chép lại được đúng 64 con non sống sót đến khi mọc lông. Bạn cẩn thận phân loại chúng thành 4 nhóm màu tách biệt: 36 con bình thường, 12 con Nâu, 12 con Bông và 4 con mang kiểu hình kép (vừa Bông vừa Nâu). Con số này khớp đến từng đơn vị phần trăm với tỷ lệ 9 3 3 1 chào mào lý thuyết của nhà khoa học Mendel. Sự phấn khích khiến bạn vội vàng mở công cụ phân tích phần mềm lên và kỳ vọng máy sẽ đóng dấu “đã xác nhận” cho thành tựu của mình.
Thế nhưng, trái với sự hân hoan, công cụ lại lạnh lùng trả về dòng trạng thái analysis_status: model_comparison_ready_with_metadata_limits. Đáng buồn và gây sốc hơn, mức độ bằng chứng (evidence) của bộ dữ liệu này bị đánh tụt thê thảm từ chuẩn G3 xuống thẳng mức G1. Tại sao một hệ thống máy tính tiên tiến lại “khó tính” và cố chấp đến vậy khi những con số bề ngoài có vẻ không thể nào sai lệch? Đó là vì nguyên tắc bao trùm trong thiết kế thí nghiệm quy định: mỗi kết quả F1–F2 phải được so với H0–H6, không chỉ so với duy nhất mô hình H1. Nếu chỉ tập trung vào một mô hình duy nhất theo cảm tính mà bỏ qua các khả năng ẩn giấu khác, chúng ta rất dễ mắc phải những sai lầm nghiêm trọng không thể vãn hồi trong việc xây dựng phả hệ lai giống di truyền.
2. Nguồn gốc của con số: Tỷ lệ 9 3 3 1 chào mào đến từ đâu?
Để hiểu cặn kẽ lý do tại sao bộ dữ liệu tuyệt đẹp trên lại bị đánh giá với mức bằng chứng thấp kỷ lục, trước tiên chúng ta phải nhìn lại bản chất của việc phân ly độc lập trong di truyền học cổ điển. Nếu giả định tính trạng theo mô hình lặn thường, xác suất kỳ vọng là sự phân ly tự do của hai locus độc lập. Đây chính là mô hình H1 (hai locus lặn thường độc lập), nơi mà màu lông bị chi phối bởi hai vị trí gen hoàn toàn không liên quan gì đến nhau trên nhiễm sắc thể thường. Khi chim bố và chim mẹ ở đời F1 đều mang dị hợp tử Ss Dd, quá trình giảm phân tạo tinh trùng và trứng sẽ sinh ra 4 loại giao tử với tỷ lệ phân bổ ngang nhau: SD, Sd, sD, và sd.
Bằng cách kẻ một bảng Punnett cơ bản – công cụ kinh điển của mọi nhà sinh học – bạn sẽ thấy sự kết hợp ngẫu nhiên của 4 loại giao tử từ bố và 4 loại giao tử từ mẹ tạo ra một mạng lưới gồm 16 ô kết quả khả thi. Phân tích 16 ô này, chúng ta thu được tỷ lệ F2 gộp giới như sau: 9/16 chim bình thường (chiếm 56,25%), 3/16 chim Bông (chiếm 18,75%), 3/16 chim Nâu (chiếm 18,75%), và 1/16 con mang kiểu hình kép Bông-Nâu hiếm có (chiếm 6,25%).
| Giao tử F1 | SD | Sd | sD | sd |
|---|---|---|---|---|
| SD | SS DD (Bình thường) | SS Dd (Bình thường) | Ss DD (Bình thường) | Ss Dd (Bình thường) |
| Sd | SS Dd (Bình thường) | SS dd (Nâu) | Ss Dd (Bình thường) | Ss dd (Nâu) |
| sD | Ss DD (Bình thường) | Ss Dd (Bình thường) | ss DD (Bông) | ss Dd (Bông) |
| sd | Ss Dd (Bình thường) | SS dd (Nâu) | ss Dd (Bông) | ss dd (Kép Bông Nâu) |
Nếu bạn là một người nuôi chim thuần túy thực hiện phép lai chào mào Bông Nâu F1 F2 và tình cờ đếm được chính xác bộ số như bảng trên, trực giác thông thường của con người sẽ lập tức kết luận rằng mô hình hai gene lặn thường (H1) chính là đáp án tuyệt đối. Tuy nhiên, trong môi trường thực tế của phân tích dữ liệu sinh học, các chuyên gia phần mềm sẽ luôn đặt ra một câu hỏi phản biện: liệu có mô hình nào khác trong danh sách (từ H0 đến H6) cũng có khả năng sinh ra cùng một bộ số tổng phân bố y hệt như thế này không?
3. Cái bẫy chết người: Tỷ lệ 9 3 3 1 chào mào cũng có thể là mô hình liên kết Z
Sự phức tạp của thế giới tự nhiên không bao giờ dừng lại ở những con số đơn giản. Trong số 7 mô hình toán học được hệ thống tự động kiểm tra, mô hình H3 (Bông lặn thường kết hợp với Nâu lặn liên kết Z, sinh ra F1 có ngoại hình khác nhau tùy theo chiều ghép thuận nghịch) là một ứng viên vô cùng đáng gờm nhưng lại thường xuyên bị người dùng bỏ quên. Ở động vật có vú như con người, con đực mang nhiễm sắc thể XY, con cái mang XX. Nhưng đối với loài chim, hệ thống nhiễm sắc thể giới tính tuân theo hệ ZZ/ZW hoàn toàn đảo ngược: chim trống là ZZ và chim mái là ZW. Đặc điểm trái khoáy này khiến quá trình di truyền liên kết giới tính ở chim mang màu sắc cực kỳ khác biệt.
Nhiễm sắc thể W ở chim mái có kích thước vô cùng khiêm tốn và gần như vắng bóng các gene mã hóa tính trạng màu sắc. Ngược lại, nhiễm sắc thể Z lại to lớn và chứa vô vàn gene quy định kiểu hình. Hãy xem xét một thiết kế lai cụ thể dưới góc nhìn của mô hình H3. Sự kỳ diệu — hay cũng chính là cái bẫy trí mạng — của cơ chế di truyền nằm ở chỗ: dưới một thiết kế phép ghép cụ thể mà các nhà phân tích gọi là “thiết kế A”, nếu bạn chỉ nhìn vào tổng số bầy chim và gộp chung toàn bộ con trống lẫn con mái ở đời F2 lại với nhau, kết quả tổng cộng thu được vẫn ra ĐÚNG CHUẨN 36 con bình thường, 12 con Bông, 12 con Nâu và 4 con kép. Một sự trùng hợp hoàn hảo đến rợn người.
Chính tài liệu hướng dẫn kỹ thuật của công cụ đã phát đi lời cảnh báo bằng nguyên văn như sau: “chỉ nhìn tỷ lệ 9:3:3:1 mà không ghi giới tính có thể khiến mô hình Z-linked bị nhầm thành hai gene lặn thường.” Khi bạn sơ suất không phân tách số liệu đếm được theo đặc điểm giới tính, mô hình H1 (lặn thường độc lập) và mô hình H3 (liên kết Z) sẽ ngay lập tức chồng lấn và trùng lặp hoàn hảo về mặt con số tổng, tạo ra một điểm mù cực lớn trong việc nhận diện mô hình. Đó là lý do giải thích tại sao công cụ thuật toán không bao giờ có thể tự tin khẳng định mô hình nào đang thực sự diễn ra bên trong tế bào, nếu bạn chỉ cung cấp cho nó một khối lượng dữ liệu đếm gộp sơ sài.
4. Bức màn được vén lên: Tách giới tính ra thì lộ gì?
Sự thật khoa học chỉ thực sự phơi bày dưới ánh sáng quang đãng khi chúng ta bắt đầu thực hiện việc xác minh giới tính chào mào bằng DNA bằng lai liên kết Z một cách triệt để, hoặc thông qua việc quan sát tỉ mỉ các đặc điểm ngoại hình dị hình giới tính sau đợt thay lông đầu tiên. Hãy lấy lại đúng 64 con F2 của bạn từ ví dụ ban đầu và tiến hành phân tách chúng thành 2 nửa bằng nhau: 32 con trống và 32 con mái, sau đó áp dụng vào bảng phân bố xác suất của mô hình H3 dưới thiết kế A.
| Kiểu hình tổng quát | Phân bổ ở Chim Trống (Normal: 3/4, Bong: 1/4) | Phân bổ ở Chim Mái (Normal: 3/8, Brown: 3/8, Bong: 1/8, Kép: 1/8) |
|---|---|---|
| Bình thường (Normal) | 24 con (chiếm 3/4 của 32 con) | 12 con (chiếm 3/8 của 32 con) |
| Nâu (Brown) | 0 con (hoàn toàn vắng bóng) | 12 con (chiếm 3/8 của 32 con) |
| Bông (Bong) | 8 con (chiếm 1/4 của 32 con) | 4 con (chiếm 1/8 của 32 con) |
| Kép Bông Nâu | 0 con (hoàn toàn vắng bóng) | 4 con (chiếm 1/8 của 32 con) |
| Kiểm tra tổng cộng | Tổng số 32 con trống | Tổng số 32 con mái |
Nhìn vào số liệu từ bảng thống kê trên, bạn có thể dễ dàng cộng nhẩm lại để kiểm tra tính toàn vẹn: (24+12) = 36 con bình thường, (0+12) = 12 con Nâu, (8+4) = 12 con Bông, (0+4) = 4 con mang kiểu hình kép. Thật bất ngờ, tổng số đếm gộp vẫn trả về con số 64 chim non khớp hoàn toàn và không sai một ly với tỷ lệ 9 3 3 1 chào mào kinh điển! Nhưng sự khác biệt sinh học lúc này lại hiện lên vô cùng rõ rệt: Nâu chỉ xuất hiện ở con mái trong phép ghép này, vì vậy mô hình liên kết Z được ưu tiên kiểm tra. Bạn có mỏi mắt tìm kiếm cũng không thấy bất kỳ một con trống màu Nâu hay một con trống kép nào hiện diện. Tất cả đều là con số 0 tròn trĩnh. Sự chênh lệch phân cực trắng đen này là bằng chứng thép, hùng hồn chứng minh cho việc yếu tố giới tính đã định hình toàn bộ diễn biến phân ly của lứa chim F2 một cách thầm lặng.
5. Thông điệp từ hệ thống: Máy nói gì khi bạn thiếu thông tin giới tính?
Nếu bạn bướng bỉnh đưa cho hệ thống máy tính một bộ dữ liệu đếm gộp không có bất kỳ thông tin nào về giới tính và chiều ghép của chim bố mẹ, bộ máy phân tích, vốn được lập trình dựa trên tiêu chuẩn khoa học khắt khe nhất, sẽ ngay lập tức kích hoạt chuỗi các giới hạn an toàn. Quyết định đầu tiên của máy: mô hình H3_BROWN_Z_LINKED_RECESSIVE lập tức bị đẩy về trạng thái score_status: not_scoreable_missing_design_metadata và bị đánh rớt điểm tuyệt đối với bic_weight: null (hệ thống từ chối chấm điểm do người dùng cung cấp thiếu siêu dữ liệu thiết kế phép ghép).
Hậu quả thứ hai, mô hình H1 (hai locus lặn thường độc lập) dù không còn đối thủ cạnh tranh trực tiếp mạnh nhất là H3 (do H3 đã bị loại khỏi vòng chấm điểm), cũng chỉ ngậm ngùi đạt điểm bic_weight 0.79 chứ không bao giờ vươn tới mức hoàn hảo 1.0. Song song đó, màn hình hệ thống sẽ liên tục trả về nguyên văn các dòng cảnh báo sắc lạnh nhằm ngăn chặn bạn thực hiện những công bố di truyền sai lầm. Cụ thể, bạn sẽ phải đối mặt với 4 lời cảnh báo đanh thép sau đây:
sex_metadata_incomplete_Z_linked_model_is_weaker: Việc thiếu sót ghi chép giới tính đã làm suy yếu đi nghiêm trọng năng lực đánh giá của máy tính đối với mô hình liên kết Z.reciprocal_cross_not_complete: Thiết kế phép lai thuận nghịch (đổi chỗ chim trống và chim mái mang đột biến) chưa được người nuôi thực hiện đầy đủ.project_has_not_declared_all_offspring_recorded: Thuật toán nghi ngờ dự án chưa khai báo việc đã ghi nhận mọi cá thể con sinh ra (bao gồm cả chim yếu, chết yểu), nghi ngờ người dùng có dấu hiệu chỉ chọn lọc chim đẹp để báo cáo.egg_fertility_hatching_survival_counts_missing: Việc thiếu hoàn toàn thông số về độ có cờ của trứng, tỷ lệ nở thành công và tỷ lệ sống sót, khiến hệ thống không thể loại trừ khả năng có một vài tổ hợp gen gây chết ở giai đoạn phôi (lethal alleles) làm lệch tỷ lệ số đếm.
Và đây là đoạn mã trạng thái bắt buộc, luôn luôn xuất hiện chễm chệ ở cuối mỗi báo cáo phân tích, như một lời nhắc nhở không ngừng về sự khiêm tốn của khoa học chân chính. Công cụ luôn kết thúc ở gene_status: not_assessed, decision_support_only, human_review_required cùng với việc phun ra một khối giới hạn JSON nguyên văn: "limits": {"biochemical_pigment_status":"unconfirmed","gene_status":"not_assessed","causal_variant_status":"not_assessed","parent_genotype_status":"not_confirmed","inheritance_status":"candidate_model_only","breeding_instruction_status":"not_an_automatic_breeding_order"}.
Để tìm hiểu tường tận hơn về quy trình thiết kế và kiểm tra nghiêm ngặt các thế hệ lai giống này, bạn có thể tham khảo thêm bài viết về phả hệ chào mào bông nâu kiểm tra f1 f2. Cho dù số lượng chim non bạn đếm được có đẹp mã đến nhường nào, thì những cỗ máy phân tích vẫn tuân thủ một cách mù quáng và trung thành với nguyên tắc: chỉ tiến hành phân tích và đưa ra kết luận trên một nền tảng bằng chứng trọn vẹn, đầy đủ mọi biến số.
6. Ngôn ngữ của bằng chứng: Thang G0 – G4 có ý nghĩa gì với người nuôi chim?
Để phân loại và xếp hạng mức độ tin cậy của bất kỳ một kết luận di truyền nào trong cơ sở dữ liệu sinh học, hệ thống thuật toán sử dụng một hệ quy chiếu gọi là thang bằng chứng, trải dài từ mức G0 cho đến G4. Sự thiếu hiểu biết hoặc hiểu lầm về các cấp độ phân loại này thường là nguyên nhân gốc rễ dẫn đến vô số những cuộc cãi vã, tranh luận nảy lửa không hồi kết trên các diễn đàn nuôi chim cảnh. Việc bộ dữ liệu bị tụt hạng thảm hại từ G3 xuống G1 trong tình huống trên là một bài học vô giá về cái giá phải trả của thói quen thu thập dữ liệu hời hợt.
Thang điểm G0 nằm ở dưới cùng của kim tự tháp, biểu thị input dữ liệu đầu vào không hợp lệ, khiến hệ thống từ chối chạy thuật toán hoàn toàn. Ví dụ điển hình nhất đã được ghi nhận: khi bạn sơ ý nhập sai dữ liệu làm trùng lặp mã chim, thuật toán hard-block đã test kỹ lưỡng sẽ ngay lập tức vấp phải 2 bản ghi trùng biến số individual_id và lập tức trả về analysis_status: input_invalid kèm dòng cảnh báo blockers: ["duplicate_individual_ids"], kết quả là công cụ đình công và không xuất ra bất kỳ model_ranking nào cả. Các mức độ đánh giá cao hơn sẽ đòi hỏi độ toàn vẹn và chiều sâu của dữ liệu tăng dần lên:
- G1: Có dữ liệu đầy đủ của một thế hệ duy nhất hoặc từ một gia đình đơn lẻ. Dữ liệu này chỉ mang tính chất của một mô hình thăm dò ban đầu, không đủ sức nặng để chứng minh bất cứ điều gì.
- G2: Đạt được G2 có nghĩa là bạn đã thu thập được F2 từ ≥2 gia đình khác nhau, phát triển độc lập. Tuy nhiên, kết quả này là mô hình ứng viên mức G2; cần phép lai độc lập và giới tính đời con để nâng bằng chứng lên mức cao hơn.
- G3: Đây là cột mốc đòi hỏi dữ liệu thiết kế vô cùng bài bản: phải có kết quả từ phép lai thuận–nghịch + giới tính của từng cá thể được ghi chép đầy đủ + thực hiện việc chấm màu đánh giá kiểu hình chỉ sau khi chim đã hoàn thành đợt thay lông đầu tiên.
- G4: Cấp độ tối cao trong lai tạo cổ điển, cần phải có dữ liệu từ các phép testcross (lai phân tích ngược với bố mẹ) + cây phả hệ được theo dõi liên tục và minh bạch trong ≥3 thế hệ rõ ràng.
Một điểm lưu ý cực kỳ quan trọng là các phần mềm hay công cụ phân tích KHÔNG bao giờ tự cấp mức độ bằng chứng G5/G6. Nguyên nhân là do các cấp độ vĩ mô đó đòi hỏi phải tiến hành các thử nghiệm giải trình tự gen trực tiếp trong những phòng thí nghiệm vô trùng. Tuy nhiên, việc duy trì ghi chép sổ tay chi tiết cũng như hiểu rõ sự thật về chim sinh sản F1 F2 có giấy tờ sẽ là nền móng vững chắc giúp người nuôi tự tin cung cấp đủ lượng metadata thiết yếu để đưa dự án của mình chạm tới cấp độ G3 và G4, từ đó khẳng định uy tín mà không cần tốn kém đến các xét nghiệm sinh học phân tử đắt tiền ở giai đoạn khởi điểm.
7. Khoa học của sự thận trọng: Vì sao công cụ từ chối chấm thay vì đoán bừa?
Rất nhiều người nuôi tỏ ra bất mãn, khó chịu và thất vọng khi nhận mã lỗi not_scoreable_missing_design_metadata thay vì một kết quả dự đoán chắc nịch để khoe khoang. Tuy nhiên, trong các mô hình đã kiểm tra, dữ liệu hiện phù hợp hơn với sự cẩn trọng khoa học, do đó công cụ từ chối đưa ra kết luận mù quáng. Máy tính được lập trình để không bao giờ “đoán bừa”, bởi vì một suy luận vội vàng và sai lệch ở thế hệ này sẽ phá hỏng toàn bộ định hướng ghép cặp, định hướng tài chính và định hướng di truyền ở hàng chục thế hệ lai tạo tiếp theo.
Thậm chí, ngay cả trong những trường hợp lý tưởng nhất mà con người có thể tạo ra, với một ca xét nghiệm mô hình H1 “sạch sẽ” không tì vết (ví dụ lứa F2 nở ra con số hoàn hảo 72 bình thường / 24 Bông / 24 Nâu / 8 kép), thì mô hình H1 vẫn chỉ đạt được bic_weight ở ngưỡng 0,8588 chứ không phải là con số 1,0 tuyệt đối. Tại sao lại có hiện tượng kỳ lạ này? Bởi vì hai mô hình di truyền linkage (gen liên kết, mô hình H4) vẫn âm thầm bám trụ và giữ khoảng ~6,8% tỷ trọng cho mỗi cái. Nguyên lý toán học đằng sau là chúng hoàn toàn có thể fit (khớp) được với khoảng cách di truyền r=0,5 để cho ra những con số dự đoán y hệt như H1, và chỉ bị thuật toán đánh tụt điểm bằng chỉ số phạt BIC vì bản thân mô hình H4 chứa thêm một tham số tính toán. Bài học lớn rút ra ở đây là bic_weight không phải xác suất gene. Chính hợp đồng diễn giải (interpretation_contract) mà hệ thống máy tự động trả về đã khẳng định một cách nguyên văn và rõ ràng: “Mức hỗ trợ tương đối giữa các mô hình đã chấm bằng BIC dưới cùng dữ liệu và giả định; không phải xác suất gene tồn tại hay genotype đã được xác nhận.”
Thêm vào đó, trong kỷ nguyên thông tin nhiễu loạn, chúng ta cũng cần cảnh giác cao độ với vô số các thông tin lan truyền vô căn cứ trên mạng xã hội về việc các nhà khoa học đã tìm ra gene màu lông chim chào mào. Based on articles retrieved from PubMed, một nghiên cứu uy tín của tác giả Li R. và cộng sự (công bố năm 2023 trên tạp chí Poultry Science, 102(6):102665, PMID 37068355, DOI 10.1016/j.psj.2023.102665) chỉ ra rằng SLC45A2 cùng với CDKN2A mới chỉ là những gene ỨNG VIÊN tiềm năng gây ra đột biến màu sắc ở loài gà, chứ hoàn toàn không phải là những gene đã được xác nhận chính thức ở các loài chim cảnh như chào mào. Tương tự như vậy, công trình nghiên cứu của tác giả Blanchet G. và cộng sự (công bố năm 2024 trên tạp chí Journal of Heredity, 115(1):32–44, DOI 10.1093/jhered/esad063) tập trung vào việc đo lường sự suy giảm đa dạng di truyền khốc liệt ở quần thể quạ Hawaii, KHÔNG phải là đo lường mối tương quan giữa sự cận huyết và tỷ lệ nở kém ở chào mào đột biến màu. Đặc biệt, chúng ta cần nhớ rằng mô hình H0 (tình trạng màu lông không di truyền ổn định) gần như luôn luôn trả về lỗi not_scoreable_control_baseline_missing đơn giản vì hệ thống cần người dùng cung cấp mẫu baseline đối chứng để so sánh, điều này hoàn toàn không có nghĩa là H0 đã bị loại trừ vĩnh viễn khỏi mọi cuộc chơi di truyền.
8. Hành động cụ thể: 6 trường bắt buộc phải ghi ngay từ lứa đầu
Một mùa sinh sản tốn kém cả tiền bạc lẫn công sức có thể mất trắng toàn bộ kho dữ liệu, lãng phí thời gian cả năm trời ròng rã chỉ vì bạn vô tình lười biếng hoặc quên ghi lại giới tính của đàn chim non khi chúng vừa đủ lớn. Để kết quả đếm tỷ lệ 9 3 3 1 chào mào của bạn không trở thành những con số ảo tưởng mà thực sự đóng góp giá trị cốt lõi vào thang bằng chứng phân tích từ G3 đến G4, hãy rèn luyện và duy trì một cuốn sổ tay hoặc file excel ghi nhận tuân thủ đúng 6 trường dữ liệu cốt lõi dưới đây. (Xin nhấn mạnh lại: Dữ liệu 64 con trong toàn bộ bài viết này là một bộ demo tổng hợp do chúng tôi xây dựng dùng để minh hoạ cách đọc kết quả công cụ, không phải đàn chim thật của một trại cụ thể nào đang hoạt động).
Nếu giả định bộ dữ liệu này theo mô hình lặn thường, xác suất kỳ vọng là rất khác so với liên kết giới tính. Do đó, việc lưu trữ hồ sơ cẩn thận là tấm khiên vững chắc nhất bảo vệ công trình nghiên cứu của bạn trước sự nhiễu loạn thông tin.
| Mã chim (ID) | Kiểu hình màu (Phenotype) | Giới tính (Sex) | Cha mẹ (Paternal/Maternal) | Lứa ấp (Clutch) | Ghi chú thêm (Survival & Hatching) |
|---|---|---|---|---|---|
| A2026-01 | Bình thường (Normal) | Trống (Z/Z) | Trống P-01 x Mái M-02 | Lứa ấp thứ 1 | Chim nở khỏe, 1 quả trứng bị tắc |
| A2026-02 | Bông (Mang kiểu gen ss) | Mái (Z/W) | Trống P-01 x Mái M-02 | Lứa ấp thứ 1 | Sức khỏe phát triển tốt, lông chuẩn |
| A2026-03 | Nâu (Z^d/W) | Mái (Z/W) | Trống P-01 x Mái M-02 | Lứa ấp thứ 2 | Lông có dấu hiệu đổi màu nhẹ ở tháng T2 |
| A2026-04 | Kép Bông Nâu | Mái (Z/W) | Trống P-01 x Mái M-02 | Lứa ấp thứ 2 | Đáng tiếc chim chết non vào ngày 15 |
Nếu bạn chưa có kinh nghiệm thiết kế mẫu bảng biểu chuẩn hóa, hãy truy cập và tải ngay form theo dõi chào mào bông nâu F1 F2 từ hệ thống để áp dụng ngay lập tức vào mùa ghép năm nay. Việc ghi chép kỷ luật này đảm bảo bạn sẽ không bao giờ vướng phải cảnh báo khó chịu về việc thiếu hụt thông số lứa nở hay bỏ sót chim non, từ đó giúp công cụ thuật toán có đủ nền tảng siêu dữ liệu vững chãi để so sánh, phân tích và chấm điểm các mô hình di truyền một cách trọn vẹn và khách quan nhất. Vậy câu hỏi mở ra ở đây là, với một hệ thống ghi chép chuẩn chỉ, bạn cần thu thập số liệu bao nhiêu con F2 mới đủ để máy móc nói chắc nịch thay vì hoài nghi?
9. Giữ nền dinh dưỡng ổn định để không nhiễu dữ liệu chấm màu
Một trong những rủi ro ngoại cảnh vô cùng lớn khi theo dõi sự biến đổi màu sắc của chào mào đột biến là sự nhiễu loạn biểu hiện kiểu hình do môi trường sinh thái, mà tác nhân ảnh hưởng tàn phá mạnh mẽ nhất chính là nguồn thức ăn cung cấp hàng ngày. Nếu bạn thực hiện các đợt chấm màu liên tục ở các mốc thời gian từ T0 (giai đoạn chim non mới mọc lông ống) cho đến T4 (giai đoạn chim trưởng thành sau mùa thay lông kế tiếp) mà lại liên tục thay đổi loại cám, chất lượng sắc tố của bộ lông mới sẽ ngay lập tức bị biến đổi bất thường do sự trồi sụt của dinh dưỡng. Khi hiện tượng này xảy ra, người nuôi rất dễ vô tình chấm nhầm sự biến động màu sắc do môi trường bên ngoài thành biểu hiện phân ly di truyền từ bên trong gen, từ đó làm sai lệch và đổ vỡ toàn bộ bộ dữ liệu quý giá.
Để đảm bảo sự ổn định tuyệt đối của kiểu hình lông nhằm phục vụ cho mục đích theo dõi di truyền, góc độ duy nhất và cốt lõi nhất được phép can thiệp là phải giữ một nền tảng dinh dưỡng nhất quán và xuyên suốt cả một kỳ theo dõi dài hạn. Việc giữ nguyên một nền cám ổn định qua suốt cả kỳ theo dõi quan trọng hơn nhiều so với việc cứ loay hoay đi tìm một loại cám “mạnh”. Cám Hạt Trứng Kiến TAICHEL 30% được định vị đúng vai trò nền tảng cho giai đoạn dưỡng nền và thay lông: dễ tiêu hóa, giúp ổn định hệ vi sinh đường ruột, phù hợp với những đàn chim F2 đột biến đang trong quá trình nuôi giữ ổn định kiểu hình chờ ngày đánh giá.
Để bảo vệ tính toàn vẹn của dữ liệu thu thập, bạn có thể tham khảo thành phần chi tiết và đặt mua trực tiếp Cám Hạt Trứng Kiến TAICHEL 30% (với mức giá vô cùng hợp lý chỉ 25.000đ/100g) ngay tại đường dẫn chính hãng này: https://taichel.vn/san-pham/cam-trung-kien-taichel-30-phan-tram/. Việc kiên định cung cấp một nền tảng sức khỏe vững chãi bằng việc chọn đúng loại cám chào mào thay lông phù hợp nhất chính là phương pháp duy nhất và thông minh nhất để bạn bảo vệ sự trong sạch, không bị nhiễu loạn của dữ liệu nghiên cứu di truyền trong suốt nhiều năm gắn bó.
10. Bài viết liên quan
Để tiếp tục mở rộng tầm nhìn và đi sâu hơn nữa vào thế giới di truyền học đầy tính ứng dụng nhưng cũng vô cùng phức tạp của dòng chào mào đột biến, mời bạn dành thời gian tham khảo thêm các bài viết chuyên sâu khác cùng hệ thống sinh thái nội dung của chúng tôi:
- Bảng kiểm phúc lợi cận huyết trước khi ghép chào mào màu
- Lai tạo chào mào màu F1 F2 lai ngược
- Ảnh chào mào Bông Bạch 8 góc chụp
- Chào mào bạch, mơ, bông: Gene màu hay kiểu hình?
- Cách nuôi chào mào căng lửa bền
11. Câu hỏi thường gặp
Tỷ lệ 9 3 3 1 chào mào là gì?
Trong sinh học cổ điển, đó là tỷ lệ phân ly kiểu hình theo đúng kỳ vọng toán học Mendel khi hai tính trạng mang alen lặn phân ly hoàn toàn độc lập với nhau (còn gọi là mô hình H1). Tuy nhiên, trong thực tế nghiên cứu chim cảnh, khi bộ dữ liệu chưa có sự phân tách giới tính rõ ràng, tỷ lệ đếm gộp khổng lồ này hoàn toàn có thể bị nhầm lẫn và che lấp mô hình di truyền liên kết Z.
Vì sao phải ghi giới tính chim non F2 ngay từ lúc mới nở?
Nếu không có siêu dữ liệu về giới tính đi kèm trong báo cáo, các mô hình di truyền liên kết giới tính (như H3) và mô hình phân ly độc lập (như H1) sẽ chồng chéo và tạo ra những con số tổng gộp y hệt nhau. Điều này khiến phần mềm phân tích sinh học vấp phải điểm mù, không thể phân biệt được bản chất gen và buộc phải kích hoạt cơ chế an toàn, hạ mức bằng chứng xuống ngưỡng thăm dò để tránh rủi ro kết luận bừa bãi.
Bằng chứng mức độ G1 với G3 khác nhau thế nào trong di truyền ứng dụng?
Cấp độ G1 chỉ đóng vai trò là những bằng chứng mang tính chất thăm dò, phác thảo sơ bộ trên một thế hệ chưa hoàn chỉnh, thiếu hụt nhiều mảnh ghép. Ngược lại, cấp độ G3 là một tiêu chuẩn khắt khe, đòi hỏi người ghép phải có sổ ghi chép giới tính cá thể một cách minh bạch, thực hiện phép lai thuận nghịch đầy đủ giữa chim bố mẹ, và phải có biên bản ghi nhận thay đổi màu lông ở các thời điểm từ chim non cho đến sau khi chim đã hoàn thành kỳ thay lông sinh lý.
Việc dùng các công cụ phân tích di truyền có khó đối với người mới không?
Bản thân công cụ phân tích không đòi hỏi bạn phải am hiểu về lập trình, nhưng nó ép buộc bạn phải rèn luyện thói quen duy trì ghi chép sổ tay hoặc lập bảng tính excel một cách vô cùng nghiêm ngặt và trung thực. Khi chất lượng dữ liệu của bạn càng sạch, càng minh bạch và tuân thủ đủ 6 trường siêu dữ liệu cốt lõi, cỗ máy thuật toán sẽ tự động phân tích sâu, chấm điểm và so sánh mô hình một cách mượt mà thay vì liên tục văng ra các cảnh báo lỗi đòi hỏi siêu dữ liệu.
Thay đổi cám liên tục có làm sai lệch kết quả theo dõi di truyền không?
Có, bởi việc đổi cám liên tục sẽ làm gián đoạn và thay đổi quá trình chuyển hóa, hấp thu hắc tố, từ đó làm biến dạng cấu trúc và chất lượng màu sắc của bộ lông mới. Sự xáo trộn này vô tình đẩy người nuôi vào sai lầm khi chấm điểm kiểu hình (phenotype) bằng mắt thường, từ đó trực tiếp đưa dòng dữ liệu nhiễu vào phần mềm và gián tiếp phá hỏng mọi kết luận di truyền.
TAICHEL có hơn 20 năm đồng hành cùng người chơi chim. Chúc các bạn và các nhà nhân giống luôn sở hữu những chú chim đột biến khỏe mạnh, duy trì được hệ thống ghi chép di truyền bài bản và chuẩn xác nhất. Mọi thắc mắc kỹ thuật cũng như nhu cầu tư vấn thiết lập nền cám ổn định, vui lòng xem chi tiết sản phẩm Cám Hạt Trứng Kiến TAICHEL 30% để được hỗ trợ chuyên sâu.