
Lai thuận nghịch chào mào là phép thử đổi vai trò trống/mái giữa hai kiểu hình để xem chiều ghép nào cho tín hiệu sớm hơn ở đời F1.
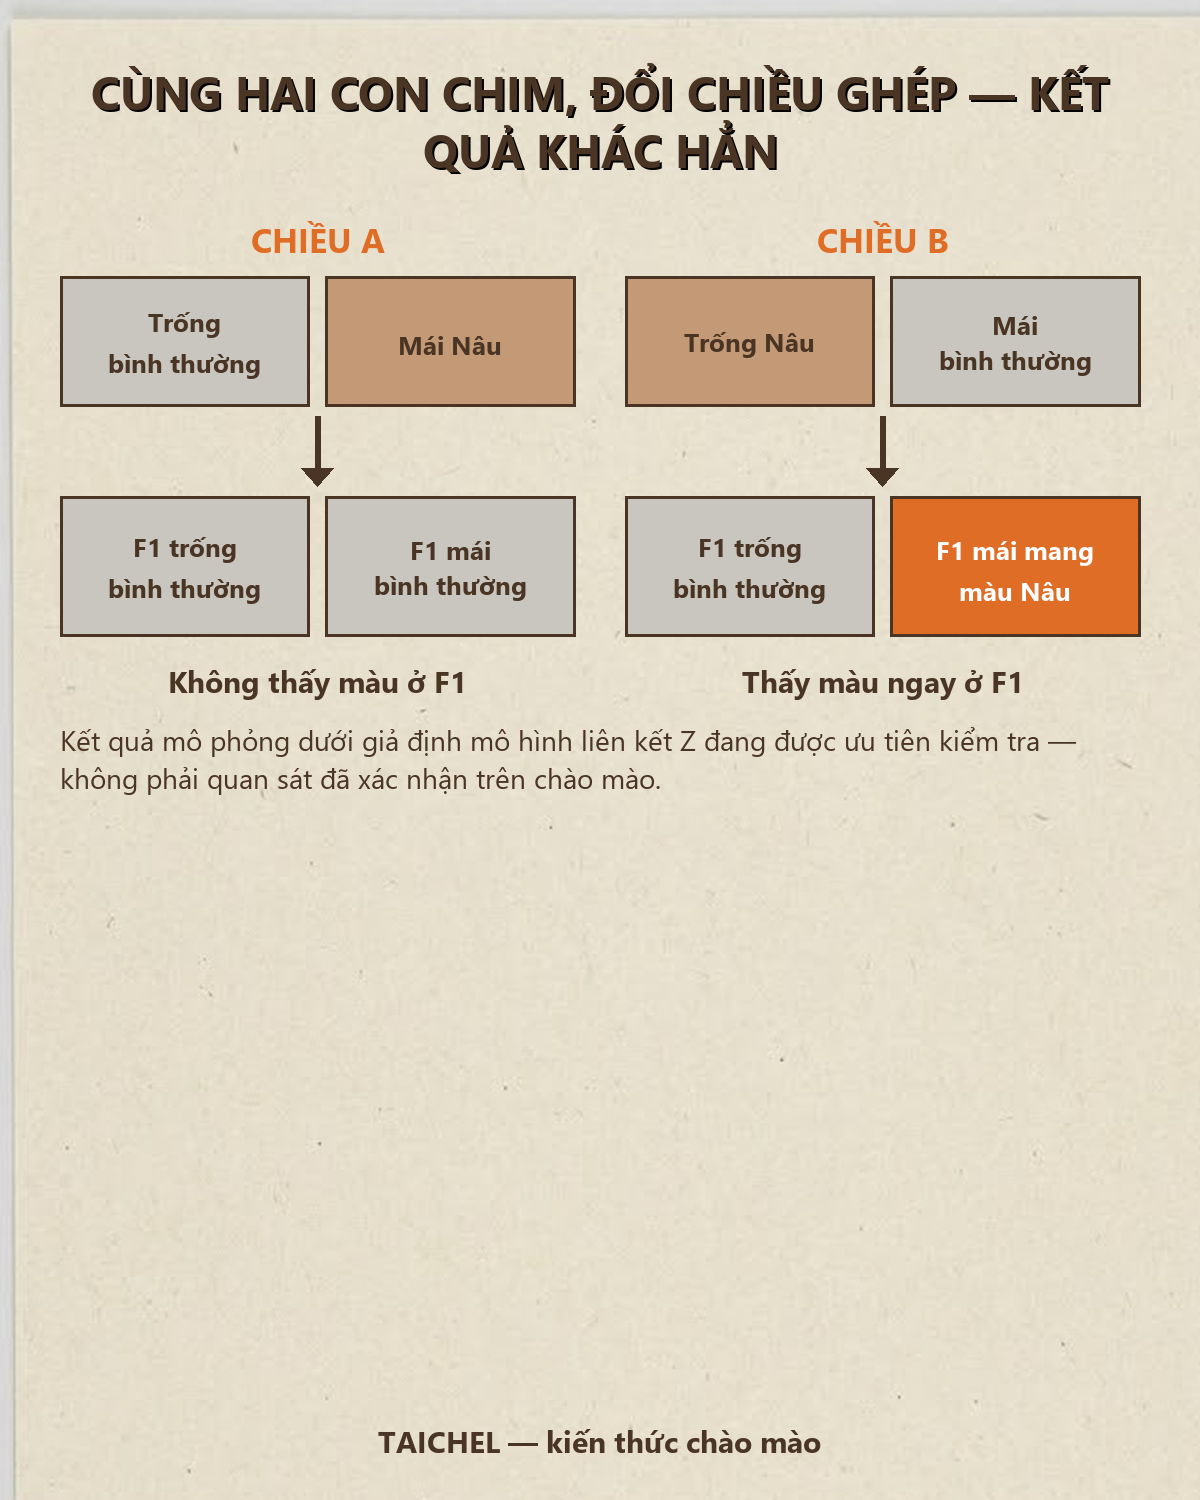
Cùng hai kiểu hình bố mẹ — một con mang màu Bông, một con mang màu Nâu — chỉ đổi vai trò ai làm trống ai làm mái, đời con F1 có thể ra khác hẳn nhau. Chạy thử qua công cụ mô phỏng nội bộ dưới mô hình liên kết Z đang được ưu tiên kiểm tra: một chiều ghép cho ra F1 mái 100% bình thường, chiều còn lại cho F1 mái 100% mang màu Nâu. Nếu bạn đang có sẵn vài con trống và mái mang các kiểu hình khác nhau và phân vân đặt con nào làm bố, con nào làm mẹ, chiều ghép không phải chi tiết phụ — nó quyết định bạn nhìn thấy tín hiệu ở đời F1 hay phải đợi tới F2, chậm mất cả một mùa sinh sản.
Bấm Thêm để Google ưu tiên hiện bài chăm chim của TAICHEL cho bạn.
1. Một cặp, hai cách ghép, hai kết quả — bằng chứng chạy thật
Để trả lời câu hỏi “đổi chiều ghép có thật sự tạo ra khác biệt không”, cách đáng tin nhất không phải suy đoán mà là chạy mô phỏng dưới đúng giả định của mô hình đang xét. Công cụ nội bộ của TAICHEL (thao tác cross trong skill di truyền) nhận vào kiểu gene giả định của bố và mẹ theo mô hình liên kết Z lặn (một trong bảy mô hình đang được so sánh cho locus Nâu), rồi tính xác suất kiểu hình ở đời con theo từng giới. Hai lần chạy dưới đây dùng đúng một mô hình, chỉ đảo vai trò bố mẹ.
Chiều A — trống mang kiểu gene bình thường (N/N) × mái mang kiểu gene Nâu (m/W):
{“genotype_probabilities”: {“female:N/W”: 0.5, “male:N/m”: 0.5}, “phenotype_probabilities”: {“female:normal”: 0.5, “male:normal”: 0.5}, “limits”: {“gene_status”: “model_assumption_only”, “inheritance_status”: “simulation_not_confirmation”}}
Đọc bảng này theo từng giới: trong nhóm mái F1, xác suất “female:normal” chiếm trọn phần của mái (không xuất hiện “female:brown” nào) — nghĩa là dưới giả định mô hình, 100% mái đời F1 ở chiều này mang kiểu hình bình thường. Trống cũng vậy.
Chiều B — trống mang kiểu gene Nâu (m/m) × mái mang kiểu gene bình thường (N/W):
{“genotype_probabilities”: {“female:m/W”: 0.5, “male:N/m”: 0.5}, “phenotype_probabilities”: {“female:brown”: 0.5, “female:normal”: 0.0, “male:normal”: 0.5}, “limits”: {“gene_status”: “model_assumption_only”, “inheritance_status”: “simulation_not_confirmation”}}
Cùng hai kiểu hình bố mẹ đó, chỉ đảo vai trò, kết quả đổi hẳn: trong nhóm mái F1 ở chiều B, xác suất “female:brown” là 0,5 còn “female:normal” bằng 0,0 — dưới giả định mô hình, toàn bộ mái đời F1 mang màu Nâu. Trống ở chiều B vẫn ra bình thường như chiều A.
Khối limits đi kèm cả hai lần chạy là phần bắt buộc phải đọc cùng con số, không phải phần phụ lục: gene_status: model_assumption_only và inheritance_status: simulation_not_confirmation. Hai dòng này nói thẳng đây là kết quả tính dưới giả định của một mô hình đưa vào, không phải phép đo trên chào mào thật ngoài đời và không phải bằng chứng gene đã tồn tại.
Con số mô phỏng ở trên không đứng một mình. Một bộ dữ liệu thực địa khác trong hệ thống, chấm đủ giới tính trên 64 cá thể F2 từ cùng loạt kiểm định, gộp cả hai giới cho ra đúng tỷ lệ 9:3:3:1 — 36 con bình thường, 12 Nâu, 12 Bông, 4 con mang cả hai kiểu hình (36+12+12+4 = 64). Tách riêng theo giới mới lộ ra khác biệt: chim trống (32 con) — 24 bình thường, 0 Nâu, 8 Bông, 0 kép; chim mái (32 con) — 12 bình thường, 12 Nâu, 4 Bông, 4 kép. Không một con trống nào mang màu Nâu hay mang cả hai kiểu hình, trong khi toàn bộ 12 con Nâu và cả 4 con kép của lứa này đều nằm ở nhóm mái — chênh lệch đủ rõ để xem đây là bằng chứng thực địa cho việc màu Nâu chỉ xuất hiện ở chim mái trong lứa đó. Đây chính là ca 64 con được nhắc lại đầy đủ hơn ở mục 6 dưới đây: lứa này có ghi giới tính nhưng không ghi chiều ghép, nên dù tách giới đã lộ ra tín hiệu rõ, công cụ phân tích vẫn chỉ chấm được ở mức bằng chứng thấp — đúng lý do bài này tồn tại. Bài đang đọc tập trung vào một việc khác: bạn phải làm gì với thông tin này trước khi thả cặp vào lồng, không phải sau khi đã có kết quả.
2. Ghép thuận, ghép nghịch là gì — hai cái lồng, không phải một cặp đảo giới tính
Hình dung hai lồng ghép khác nhau, không phải một lồng đổi vai trò của cùng hai con chim. Lồng 1: trống mang kiểu hình Bông ghép với mái mang kiểu hình Nâu — gọi chiều này là chiều A. Lồng 2: một cặp khác, cùng nhóm kiểu hình bố mẹ nhưng đảo vai trò — trống mang kiểu hình Nâu ghép với mái mang kiểu hình Bông — gọi chiều này là chiều B. Gọi chiều nào là “thuận”, chiều nào là “nghịch” chỉ là quy ước bạn tự đặt trước khi ghi sổ; không có chiều nào đúng hơn chiều nào về bản chất sinh học, miễn bạn giữ nhất quán và ghi rõ trong suốt cả lứa.
Điểm dễ hiểu nhầm nhất: “đổi chiều ghép” không có nghĩa là lấy đúng hai con chim đã ghép ở Lồng 1 rồi đảo giới tính của chúng cho Lồng 2. Giới tính một cá thể chim là cố định, không đổi được. Ghép thuận và ghép nghịch trong nghĩa lai thuận nghịch (reciprocal cross) luôn cần hai cặp bố mẹ khác nhau — cùng hai nhóm kiểu hình đang so sánh, nhưng đảo vai trò trống/mái giữa hai cặp đó. Nếu trại chỉ có đúng một con Bông và một con Nâu, bạn chỉ ghép được một chiều; muốn có cả hai chiều để so sánh, cần thêm ít nhất một con Bông và một con Nâu khác giới còn lại. Thuật ngữ liên quan (kiểu hình, kiểu gene, P/F1/F2) xem thêm ở từ điển di truyền màu lông chào mào nếu chưa quen.
Một cách khác để nhớ: “thuận” và “nghịch” không mô tả một hành động bạn làm với hai con chim cụ thể, mà mô tả cách bạn phân công vai trò trống/mái theo kiểu hình khi bố trí nhiều cặp trong cùng một mùa ghép. Nếu trại chỉ có một cặp, khái niệm “đổi chiều” không áp dụng được cho tới khi có thêm chim — ghép chiều đang có, ghi đầy đủ, và đợi có thêm cá thể phù hợp cho chiều còn lại ở mùa sau.
3. Vì sao chiều ghép lại quan trọng: mái chỉ có một bản sao nhiễm sắc thể Z
Chim thuộc nhóm có hệ nhiễm sắc thể giới tính ZW, ngược với hệ XY quen thuộc ở người: chim trống mang hai nhiễm sắc thể Z (ZZ), chim mái mang một Z và một W (ZW), trong đó W nhỏ và không mang bộ gene đối ứng đầy đủ với Z. Đây là khung sinh học chung của loài chim, không phải một phát hiện riêng cho chào mào.
Mô hình liên kết Z đang được ưu tiên kiểm tra cho locus Nâu giả định rằng biến thể tạo ra kiểu hình Nâu nằm trên nhiễm sắc thể Z. Nếu giả định này đúng: ở chim trống (hai bản sao Z), biến thể cần có mặt ở cả hai bản sao mới biểu hiện ra ngoài — giống cách một gene lặn thường cần hai bản sao. Ở chim mái, vì chỉ có đúng một bản sao Z (không có bản sao Z thứ hai để che), một bản sao biến thể duy nhất là đủ để biểu hiện ngay. Đây là lý do kỹ thuật vì sao chiều ghép ảnh hưởng tới việc con nào ở đời F1 nhận được bản sao cần thiết: chim trống truyền một bản sao Z cho tất cả con mái, và một bản sao Z khác cho tất cả con trống; chim mái chỉ truyền W cho con mái và Z cho con trống. Đảo vai trò bố mẹ nghĩa là đảo luôn nguồn gốc của bản sao Z duy nhất mà mỗi con mái F1 nhận được.
Cần nói rõ ranh giới ở đây: câu đúng để dùng là “mô hình liên kết Z được ưu tiên kiểm tra”, không phải “màu Nâu liên kết giới tính” hay bất kỳ câu nào coi như đã xác nhận. Giá trị chẩn đoán của phép thử hai chiều nằm chính ở chỗ nó có thể sai: nếu locus Nâu thực chất là một gene thường (không nằm trên Z) chứ không phải liên kết Z, đổi chiều ghép sẽ không tạo ra khác biệt nào ở F1 — cả hai chiều đều cho kết quả giống hệt nhau. Chính vì vậy, khi hai chiều thật sự cho ra kết quả khác nhau rõ rệt, đó là một tín hiệu ủng hộ mô hình liên kết Z hơn các mô hình cạnh tranh — không phải bằng chứng đã xác nhận locus, và càng không phải cơ sở để gọi tên một gene cụ thể.
4. Bảng so sánh hai chiều ghép
Bảng dưới đây tóm tắt kết quả mô phỏng ở mục 1, cộng thêm một dòng đối chứng cho tình huống mô hình liên kết Z không đúng — để thấy rõ vì sao phép thử hai chiều có giá trị phân biệt.
| Chiều ghép | Bố mẹ | F1 trống (mô phỏng) | F1 mái (mô phỏng) | Thấy được gì, ở đời nào |
|---|---|---|---|---|
| Chiều A | Trống bình thường (N/N) × Mái Nâu (m/W) | Bình thường | Bình thường | Không thấy tín hiệu Nâu ở F1 dưới giả định liên kết Z; phải đợi F2 mới có cơ hội thấy con Nâu xuất hiện |
| Chiều B | Trống Nâu (m/m) × Mái bình thường (N/W) | Bình thường | Mang màu Nâu | Thấy tín hiệu ngay ở F1, ở toàn bộ mái — không cần đợi tới F2 |
| Đối chứng — nếu Nâu KHÔNG liên kết Z | Cả hai chiều A và B như trên | Bình thường ở cả hai chiều | Bình thường ở cả hai chiều | Hai chiều cho kết quả giống hệt nhau; đổi chiều không giúp thấy sớm hơn, vẫn phải đợi F2 như bình thường |
Dòng đối chứng là lý do bảng này chỉ nên dùng để đọc kết quả, không dùng để đặt cược trước. Trước khi ghép, bạn không biết chắc locus Nâu có thật sự liên kết Z hay không — đó chính là điều đang được kiểm tra. Đổi chiều ghép là một cách rẻ để có cơ hội thấy tín hiệu sớm nếu mô hình đúng, chứ không phải một công thức bảo đảm ra màu.
5. Quy trình chọn chiều ghép — các bước cụ thể
- Xác nhận kiểu hình của cả hai con ở mốc M5 (sau khi thay lông đầu), không dùng nhãn chốt sớm từ giai đoạn lông ống — lông non thay đổi nhanh và dễ đánh lừa mắt thường.
- Xác định giới tính đáng tin của từng con — bằng xét nghiệm DNA hoặc hành vi khi đã trưởng thành, không suy từ hình thái chim non. Chiều ghép vô nghĩa nếu giới tính ghi sai.
- Xác định rõ mục tiêu của lần ghép này. Nếu mục tiêu là quan sát tín hiệu sớm để so sánh mô hình, và bạn có nhiều hơn một cặp khả dụng, ưu tiên bố trí ít nhất một cặp theo chiều đặt con mang kiểu hình Nâu làm mái — theo đúng giả định mô hình liên kết Z đang xét. Nếu mục tiêu chỉ là nhân giống thông thường, không bắt buộc phải chọn chiều theo cách này.
- Rà bảng kiểm phúc lợi trước khi ghép — quan hệ huyết thống, sức khoẻ, tuổi sinh sản của cả hai con phải đạt trước khi tính tới chuyện chiều ghép nào cho kết quả sớm hơn; xem bảng kiểm phúc lợi và cận huyết trước khi ghép. Một cổng phúc lợi không đạt thì dừng, bất kể chiều ghép hứa hẹn thế nào.
- Ghi quyết định chiều ghép trước khi thả cặp vào cùng lồng — không suy diễn ngược sau khi đã có kết quả F1. Quyết định ghi trước mới có giá trị kiểm chứng được; ghi sau khi đã biết kết quả chỉ là diễn giải lại.
- Bố trí cả hai chiều ở các cặp khác nhau nếu có đủ chim — đây là điều kiện để đạt mức bằng chứng cao hơn thay vì kẹt ở một gia đình duy nhất. Muốn thiết kế một thí nghiệm nhiều thế hệ đầy đủ, so sánh nhiều mô hình cạnh tranh cùng lúc, xem thêm thiết kế phép lai F1–F2 và lai ngược — bài đó đi sâu vào toàn bộ quy trình thiết kế thí nghiệm, còn bài này chỉ tập trung vào quyết định chọn chiều cho một lần ghép cụ thể.
- Ghi đủ sáu trường bắt buộc ngay từ ngày ghép cặp (mục 6 dưới đây), không đợi tới khi có trứng mới ghi.
- Sau khi F1 ra lông ổn định ở mốc M5, đối chiếu với bảng ở mục 4 — khác biệt giữa hai chiều chỉ là tín hiệu ủng hộ một mô hình, không phải kết luận, đặc biệt nếu mỗi chiều mới chỉ có một cặp.
Ví dụ áp dụng quy trình
Trại có bốn con đủ điều kiện ghép mùa này: Trống 07 (kiểu hình bình thường, đã xác nhận giới tính bằng hành vi ấp và tán tỉnh qua hai mùa), Mái 03 (kiểu hình Nâu, xác nhận DNA), Trống 12 (kiểu hình Nâu, xác nhận DNA), Mái 09 (kiểu hình bình thường, xác nhận hành vi). Cả bốn đã qua bảng kiểm phúc lợi, không có quan hệ huyết thống trực hệ hay anh chị em ruột giữa hai cặp dự kiến. Mục tiêu mùa này là vừa nhân giống vừa thử phân biệt mô hình, nên trại quyết định ghép cả hai chiều: Lồng A ghép Trống 07 × Mái 03 (chiều dự kiến F1 bình thường theo bảng mục 4), Lồng B ghép Trống 12 × Mái 09 (chiều dự kiến F1 mái mang màu Nâu). Cả hai quyết định được ghi vào sổ đúng ngày thả cặp, trước khi có bất kỳ trứng nào, kèm đủ sáu trường ở mục 6. Khi F1 của cả hai lồng ra lông ổn định ở mốc M5, trại đối chiếu: nếu Lồng B thật sự cho mái mang màu Nâu còn Lồng A vẫn bình thường, đó là một tín hiệu nhất quán với mô hình liên kết Z ở hai gia đình độc lập — gần hơn với mức bằng chứng có thể dùng để so sánh mô hình một cách nghiêm túc, dù vẫn cần thêm dữ liệu để đi xa hơn kết luận “mô hình ứng viên”.
6. Ghi chép bắt buộc: chiều ghép là một trong sáu trường không được bỏ trống
Rubric ghi chép của TAICHEL quy định sáu trường bắt buộc cho mỗi dòng dữ liệu sinh sản: mã cá thể, giới tính kèm căn cứ xác định, chiều ghép, ngày ghi, điều kiện ánh sáng khi chụp, và người ghi. Toàn bộ sáu trường này và cách chấm màu theo mốc tuổi được trình bày đầy đủ ở rubric ghi chép phenotype 5 mốc M1–M5; bài đang đọc chỉ nhấn mạnh riêng trường chiều ghép vì nó là trường dễ bị bỏ qua nhất khi người nuôi chỉ ghi “hai con này ở chung lồng” mà không ghi rõ ai là trống ai là mái.
Hậu quả của việc bỏ trống trường này không phải giả định — đã có ca thật trong dữ liệu vận hành. Một lứa F2 đếm được đúng 64 con, khớp gần như tuyệt đối tỷ lệ 9:3:3:1 (36 bình thường, 12 Nâu, 12 Bông, 4 con kép) mà lý thuyết hai gene lặn thường độc lập dự đoán. Nhưng vì hồ sơ không ghi giới tính và không ghi chiều ghép, công cụ phân tích hạ mức bằng chứng từ G3 xuống G1, đánh dấu mô hình liên kết Z là not_scoreable_missing_design_metadata — từ chối chấm, không phải chấm thấp — và ngay cả mô hình “trúng” nhất về mặt số học cũng chỉ còn bic_weight 0,79 thay vì tiệm cận 1,0. Cảnh báo máy trả nguyên văn cho ca này gồm cả dòng reciprocal_cross_not_complete — thiếu đúng loại dữ liệu mà bài này đang nói tới.
Muốn có sổ mẫu để ghi đủ sáu trường ngay từ đầu, dùng form theo dõi chào mào Bông Nâu F1–F2 có sẵn cấu trúc cột, chỉ cần thêm đúng một cột “chiều ghép” nếu form hiện tại của bạn chưa có.
7. Sai lầm phổ biến khi chọn hoặc ghi chiều ghép
Ghép xong rồi mới nhớ ra quên ghi ai là trống ai là mái. Chỉ ghi “hai con này ở chung lồng” xoá mất khả năng biết đó là chiều A hay chiều B, dù sau này vẫn còn cả hai con để kiểm tra lại giới tính.
Nhầm “đảo cá thể vào ô dữ liệu” với “đã thử cả hai chiều”. Đổi tên trong bảng tính cho hai con đã ghép sẵn không tạo ra một cặp mới — chiều ghép thật sự chỉ đổi khi có một cặp bố mẹ khác, đảo đúng giới tính trống/mái giữa hai con khác cá thể.
Suy luận ngược từ một cặp duy nhất. Thấy F1 mái ra màu Nâu ở một cặp rồi kết luận ngay mô hình liên kết Z đã đúng — đây là loại câu bị cấm theo nguyên tắc epistemic của cụm bài này. Một cặp chỉ là một gia đình, dừng ở mức bằng chứng thăm dò; cần lặp lại ở nhiều gia đình độc lập, đủ cả hai chiều, mới đạt mức được coi là có hỗ trợ.
Ghi giới tính con non bằng cách đoán hình thái. Hình thái ở chim non gần như không đáng tin để phân biệt trống mái; ghi khống rồi dùng con số đó để tính chiều ghép sẽ làm sai lệch toàn bộ phép so sánh hai chiều mà không ai nhận ra cho tới khi đối chiếu lại bằng DNA hoặc hành vi lúc trưởng thành.
Chỉ ghép một chiều rồi coi kết quả “không thấy gì đặc biệt” là bằng chứng phủ định mô hình. Nếu chiều đã ghép đúng là chiều dự kiến cho ra F1 bình thường (chiều A trong bảng mục 4), việc không thấy màu ở F1 là kết quả đúng như kỳ vọng của chính mô hình liên kết Z, không phải bằng chứng chống lại nó.
Trộn dữ liệu của hai chiều vào chung một dòng thống kê. Gộp số con F1 của Lồng A và Lồng B thành một tổng chung “tất cả F1 mùa này” sẽ xoá mất chính tín hiệu cần tìm — tỷ lệ Nâu ở mái chỉ lộ ra khi tách riêng theo từng chiều ghép, gộp lại sẽ pha loãng con số và có thể trông như không có khác biệt nào cả dù thực tế có.
8. Khi nào cách này không còn đúng
Toàn bộ lập luận ở trên đứng trên một giả định chưa được xác nhận: locus Nâu liên kết với nhiễm sắc thể Z. Đây là mô hình đang được ưu tiên kiểm tra dựa trên dữ liệu hiện có, không phải kết luận cuối cùng. Bốn tình huống dưới đây làm cách chọn chiều ghép ở bài này mất giá trị hoặc cần xem lại:
- Nếu locus Nâu thực chất là một gene thường, không liên kết Z — đổi chiều ghép sẽ không tạo ra khác biệt nào ở F1; cả hai chiều đều cho kết quả giống hệt nhau, và vẫn phải đợi tới F2 mới có cơ hội thấy con mang màu, đúng như dòng đối chứng ở bảng mục 4.
- Nếu Bông và Nâu tương tác với nhau thay vì hai locus độc lập — ví dụ Bông che một phần biểu hiện của Nâu, hoặc hai locus nằm gần nhau trên cùng nhiễm sắc thể — bảng so sánh đơn giản ở mục 4 không còn áp dụng nguyên trạng. Cần xem lại toàn bộ các mô hình cạnh tranh đang được so sánh, không chỉ dừng ở mô hình liên kết Z; hai locus nằm gần nhau trên cùng nhiễm sắc thể giải thích một trong các khả năng này ảnh hưởng ra sao tới tỷ lệ đời con.
- Nếu chỉ có một cặp mỗi chiều, chưa lặp lại ở nhiều gia đình độc lập — kết quả dừng ở mức bằng chứng thăm dò, dù chiều nào cũng cho ra đúng như bảng dự đoán. Số con F2 hợp lệ để đủ tự tin về một mô hình áp dụng nguyên tắc tương tự cho câu hỏi cần bao nhiêu dữ liệu mới đủ.
- Nếu giới tính của bố mẹ hoặc đời con chưa xác định đáng tin — toàn bộ phép so sánh hai chiều mất giá trị chẩn đoán, vì không còn biết chắc đang so sánh đúng nhóm mái hay đã lẫn sang nhóm trống.
Nói ngắn gọn: bảng ở mục 4 là công cụ để đọc kết quả và đặt kỳ vọng có căn cứ, không phải luật đã được xác nhận cho loài chào mào. Ở chào mào, chưa có locus màu nào — kể cả Bông lẫn Nâu — được xác nhận trực tiếp; mọi câu chữ trong bài này giữ ở mức mô hình ứng viên đang kiểm tra, không phải kết luận cuối cùng về cơ chế di truyền thật của loài.
Một điểm dễ bị bỏ qua: ngay cả khi hai chiều cho đúng kết quả như bảng dự đoán ở một gia đình, con số đó vẫn có thể do trùng hợp thống kê ở mẫu nhỏ, không nhất thiết vì mô hình đúng. Xác suất một mô phỏng ngẫu nhiên tình cờ khớp đúng chiều hướng kỳ vọng không phải bằng không, đặc biệt khi số con F1 quan sát được còn ít. Đây là lý do quy trình ở mục 5 yêu cầu lặp lại ở nhiều gia đình độc lập trước khi coi kết quả là có hỗ trợ, chứ không dừng lại sau lần ghép đầu tiên dù kết quả có vẻ “đúng như mong đợi”.
9. Câu hỏi thường gặp
Đổi chiều ghép có làm thay đổi bản chất di truyền của cặp bố mẹ không? Không. Chiều ghép không tạo ra gene mới và không đổi kiểu gene sẵn có của hai con — nó chỉ ảnh hưởng tới việc bạn nhìn thấy kết quả ở đời con sớm hay muộn, và điều đó chỉ đúng nếu mô hình liên kết Z là mô hình phù hợp cho locus đang xét. Nếu mô hình đó sai, đổi chiều không thay đổi gì.
Chỉ có đúng một con trống và một con mái, không có cặp thứ hai để ghép chiều còn lại thì sao? Cứ ghép chiều đang có, ghi đầy đủ sáu trường bắt buộc, đừng cố suy luận ra chiều còn lại khi chưa từng ghép thật. Kết quả một chiều duy nhất vẫn dùng được, chỉ dừng ở mức bằng chứng thấp hơn cho tới khi có thêm một cặp ghép chiều kia.
Ghép nghịch rồi mà F1 mái vẫn ra bình thường, không thấy màu Nâu đâu cả thì phải hiểu sao? Có vài khả năng cần loại trừ trước khi kết luận bất cứ điều gì: mô hình liên kết Z không đúng cho locus này, kiểu hình bố mẹ đã ghi chưa chính xác (một trong hai con không thật sự mang kiểu hình như đã chấm), hoặc mẫu còn quá nhỏ. Rà lại đủ sáu trường ghi chép trước khi nghiêng về bất kỳ khả năng nào.
“Thuận” và “nghịch” có phải là đảo giới tính của đúng hai con chim đã ghép trước đó không? Không thể — giới tính một cá thể chim cố định, không đổi được. Ghép thuận và ghép nghịch luôn là hai cặp bố mẹ khác nhau, cùng nhóm kiểu hình nhưng đảo vai trò trống/mái giữa hai cặp. Gọi chiều nào là “thuận” chỉ là quy ước bạn tự đặt trước khi ghi sổ.
10. Việc làm được ngay hôm nay
Trước khi thả cặp tiếp theo vào cùng một lồng: xác nhận lại kiểu hình của cả hai con ở mốc M5, xác định giới tính bằng căn cứ đáng tin thay vì đoán hình thái, và ghi rõ quyết định chiều ghép vào sổ trước khi ghép — không suy diễn ngược sau khi đã có kết quả. Nếu trại đang có nhiều hơn một cặp khả dụng, cân nhắc bố trí cả hai chiều ở các cặp khác nhau để có cơ hội thấy tín hiệu sớm hơn ở ít nhất một trong hai chiều, đồng thời tiến gần hơn tới mức bằng chứng đủ để so sánh mô hình một cách nghiêm túc thay vì chỉ dừng ở một gia đình đơn lẻ. Ghi đủ sáu trường bắt buộc ngay từ ngày ghép, đừng đợi tới khi có trứng. Nếu chỉ có một cặp khả dụng mùa này, không sao — ghép chiều đang có, ghi đầy đủ, và giữ trong kế hoạch việc tìm thêm cá thể phù hợp cho chiều còn lại ở mùa sau, thay vì bỏ qua hẳn ý tưởng lai thuận nghịch chỉ vì chưa đủ chim ngay lúc này.
Bản đồ đầy đủ của cả cụm bài — thuật ngữ, cách ghi, cách ghép, cách đọc kết quả — có tại trang tổng hợp BioBirdDNA. Đổi chiều ghép không bảo đảm ra màu, và không biến một mô hình đang kiểm tra thành kết luận đã xác nhận — nó chỉ giúp bạn không phải chờ hết một mùa sinh sản mới biết mình vừa bỏ lỡ điều có thể đã thấy sớm hơn.