
Cận huyết chào mào F1 — ghép hai con chào mào F1 cùng bố mẹ (anh chị em ruột) với nhau — là chủ đề bài này: vì sao nó ra kiểu hình lặn nhanh hơn thật, cái giá phải trả, và vì sao BioBirdDNA chặn cứng cặp đó.
Có — ghép hai con chào mào F1 cùng bố mẹ với nhau (anh chị em ruột) thật sự cho ra kiểu hình lặn nhanh hơn, đúng như bạn đang nghĩ khi nhìn lứa F1 đầu tiên và tính đường ngắn nhất tới F2 có màu. Đây không phải chuyện đồn đại, và bài này không giả vờ nó không hiệu quả. Nhưng cái giá là hệ số cận huyết đời con của cặp anh–em ruột toàn phần — 0,25, so với gần như 0 ở một cặp không họ hàng — và đó chính xác là lý do công cụ BioBirdDNA chặn cứng cặp này, không có nút bỏ qua dù điểm số màu có cao đến đâu. Bài này nói rõ cơ chế, cái giá, vì sao công cụ không cho đánh đổi, và cách ra F2 mà không phải đánh đổi lứa con.
Bấm Thêm để Google ưu tiên hiện bài chăm chim của TAICHEL cho bạn.
Vì sao ghép anh chị em ruột ra kiểu hình lặn nhanh hơn — cơ chế thật
Nói thẳng cơ chế trước, vì né nó thì bài này vô nghĩa. Trong các mô hình đang được BioBirdDNA kiểm định cho hai kiểu hình Bông và Nâu, ký hiệu S/s và D/d chỉ là allele làm việc trong mô hình — không phải tên gene đã xác nhận ở chào mào (Pycnonotus jocosus). Nếu bạn chưa quen các thuật ngữ này, từ điển di truyền màu lông chào mào giải thích riêng phần phenotype-genotype hay bị nhầm.
Ở một phép ghép P kinh điển (Bông thuần × Nâu thuần), toàn bộ đời F1 sinh ra từ cùng một cặp bố mẹ là anh chị em ruột với nhau, và theo mô hình đang thử nghiệm, chúng mang cùng tổ hợp allele ẩn Ss Dd. Hai con F1 cùng ổ chia sẻ trung bình một nửa allele nhận từ mỗi bố mẹ — di truyền học gọi đây là quan hệ trực hệ gần (identity by descent). Nếu bố mẹ ban đầu mang allele lặn liên quan tới Bông hoặc Nâu, xác suất một cặp anh–em ruột cùng mang allele đó và cùng truyền nó cho một quả trứng cao hơn hẳn so với ghép với một con hoàn toàn không họ hàng.
Đó là toàn bộ lý do ghép F1 × F1 anh em ruột “ra màu nhanh”. Không phải mẹo, không phải kinh nghiệm dân gian — là hệ quả thống kê trực tiếp của việc hai cá thể chia sẻ nguồn gen. Ghép chéo dòng (F1 từ cặp bố mẹ này với F1 từ cặp bố mẹ khác) vẫn có thể ra kiểu hình lặn ở F2, nhưng xác suất thấp hơn và cần nhiều lứa hơn để nhìn thấy — trừ khi cả hai dòng F1 đó đều mang cùng allele mục tiêu, việc mà bạn phải xác nhận qua dữ liệu đời con thật, không phải qua vẻ ngoài.
Nhưng chính cơ chế thống kê vừa nói cũng là cái giá, không phải hai chuyện tách rời: cùng một quá trình làm tăng khả năng gặp lại allele màu mục tiêu cũng làm tăng khả năng gặp lại mọi allele lặn có hại khác đang ẩn trong dòng máu đó. Hiệu quả và rủi ro đến từ đúng một nguồn — phần tiếp theo nói rõ cái giá đó bằng số.
Cái giá — cận huyết không chỉ là lý thuyết trên giấy
Cơ chế thống kê ở trên là con dao hai lưỡi. Cùng một quá trình làm tăng khả năng gặp lại allele lặn quy định màu cũng làm tăng khả năng gặp lại mọi allele lặn khác đang ẩn trong dòng máu đó — kể cả những allele không liên quan gì tới màu lông và không ai nhìn thấy được cho tới khi nó biểu hiện ở lứa con. Đây không phải suy luận riêng của BioBirdDNA; đó là lý do hệ số cận huyết tồn tại như một con số cần theo dõi, không phải một khái niệm trừu tượng.
Bài bảng kiểm phúc lợi cận huyết trước khi ghép chào mào màu là nguồn tham chiếu chính cho phần cận huyết cơ bản — định nghĩa, cách đọc phả hệ, hệ số 0,25 so với 0,0 theo kết quả rank-mates. Bài này không lặp lại phần đó, mà đi thẳng vào câu hỏi hẹp hơn: ghép anh chị em ruột trong cùng lứa F1, khi bạn đã có sẵn F1 trong tay và không muốn chờ thêm một mùa.
Về mức độ ảnh hưởng thực tế, cần nói rõ giới hạn bằng chứng thay vì bịa số cho chào mào. Nghiên cứu của Hemmings, Slate và Birkhead (2012, Nature Communications, DOI 10.1038/ncomms1870) trên chim sẻ vằn (Taeniopygia guttata) — một loài chim biết hót khác họ, không phải chào mào — ghi nhận cặp ghép cận huyết có tỷ lệ trứng nở thấp hơn rõ rệt so với cặp không họ hàng (25,2±6,4% so với 41,4±3,9% trong thiết kế của nghiên cứu đó), và phần lớn chênh lệch này đến từ tử vong phôi giai đoạn sớm chứ không phải giảm khả năng thụ tinh. Con số phần trăm này là của chim sẻ vằn, không được suy diễn thẳng thành con số cho chào mào của bạn — nhưng nó cho thấy một hướng tác động đáng cân nhắc ở chim biết hót nói chung: cận huyết gần có thể làm giảm mạnh tỷ lệ sống sót của phôi, không chỉ “làm chim yếu hơn một chút” như cách nhiều người hình dung.
Định tính, phần lớn tài liệu chăn nuôi và bảo tồn chim mô tả hệ quả cận huyết gần theo cùng một hướng: sức sống lứa con giảm, tỷ lệ nở và tỷ lệ sống sau nở giảm, khả năng đề kháng bệnh thấp hơn, và một số bất thường phát triển xuất hiện với tần suất cao hơn ở quần thể có hệ số cận huyết cao. Đây là mô tả định tính, không phải con số đo được cho chào mào — và đó chính là lý do công cụ không đợi bạn tự cân nhắc rủi ro này theo trực giác.
Vì sao BioBirdDNA chặn cứng, không có nút bỏ qua
Đây là phần kỹ thuật quan trọng nhất bài, và nó trả lời thẳng câu hỏi “tại sao tôi không thể ép công cụ chấp nhận cặp này nếu tôi chấp nhận rủi ro”. Theo ADR-004 — quyết định kiến trúc nội bộ “Hard constraints trước hàm điểm ghép” của skill biobirddna-genetics — vấn đề được đặt ra rất rõ: một hàm điểm scalar (một con số duy nhất) có thể vô tình cho cặp quan hệ gần thắng, chỉ vì xác suất ra màu của nó tính ra cao hơn. Quyết định thiết kế là:
Welfare, direct ancestor, full sibling và ngưỡng cận huyết cấu hình được đánh giá trước hàm điểm. Blocked pair không eligible dù score số cao.
Nói theo cách vận hành: công cụ không tính điểm màu cho cặp anh–em ruột rồi so sánh nó với các cặp khác. Nó loại cặp đó trước khi hàm điểm màu chạy tới. Không có trọng số nào, không có tham số cấu hình nào, có thể lật ngược điều đó — chính tài liệu ghi rõ “Weight không thể vô hiệu hóa policy”. Đây không phải một giới hạn kỹ thuật tạm thời cần vá; đó là lựa chọn có chủ ý, đặt sức khoẻ và phúc lợi lứa con ở vị trí không thể mặc cả bằng một con số hấp dẫn hơn.
Một chi tiết quan trọng khác: cặp bị chặn không bị xoá khỏi báo cáo. Nó vẫn xuất hiện trong danh sách kết quả, kèm lý do bị chặn, để bạn thấy công cụ đã cân nhắc và từ chối, chứ không phải biến mất khó hiểu. Nguyên tắc này áp dụng chung cho toàn bộ hệ thống bài BioBirdDNA: mọi kết quả ghép ở trạng thái hỗ trợ quyết định (decision_support_only), cần người thật xem lại, và mặc định khoá cứng quan hệ trực hệ cùng full-sibling — không có “chế độ nới lỏng” ẩn cho người dùng thường.
Cách ra F2 đúng mà không ghép anh chị em ruột
Đây là phần nhiều người bỏ qua vì nghĩ “không ghép anh em thì làm sao có F2”. Có cách, nhưng nó tốn thêm thời gian và chim — đó là cái giá đổi lại cho một chương trình lai tạo bền được.
Nguyên tắc: bạn cần ít nhất hai nguồn Bông độc lập và hai nguồn Nâu độc lập — nghĩa là hai cặp P (bố mẹ gốc) không họ hàng với nhau, mỗi cặp tự sinh ra một lứa F1 riêng. Để tránh nhầm nguồn gốc khi chạy song song nhiều dòng, kiểm tra phả hệ ba thế hệ phải làm ngay từ đầu, không phải sau khi đã lỡ ghép nhầm. Khi cả hai lứa F1 đều mang cùng tổ hợp allele mục tiêu (xác nhận qua dữ liệu đời con, không phải qua suy đoán từ ngoại hình), bạn ghép một con F1 từ dòng A với một con F1 từ dòng B. Hai con này về mặt di truyền có thể giống nhau ở tổ hợp allele đang quan tâm, nhưng không phải anh chị em ruột — hệ số cận huyết đời con của chúng gần với 0 thay vì 0,25.
Tìm nguồn độc lập thứ hai ở đâu trong thực tế: ưu tiên một trại giống khác — không cùng lô ấp, không cùng đàn bố mẹ với dòng bạn đang có — và hỏi thẳng người bán về phả hệ ba thế hệ trước khi nhận chim, thay vì suy đoán “chắc không họ hàng vì mua chỗ khác”. Hội nhóm nuôi chim màu có ghi chép phả hệ, hoặc trại giống lâu năm có sổ sách, là nguồn đáng tin hơn chợ chim lẻ hoặc người bán không lưu hồ sơ gốc. Nếu người bán không cung cấp được phả hệ, coi như chưa xác nhận được là dòng độc lập — không suy đoán bằng màu lông hay nơi mua, vì hai dòng không họ hàng vẫn có thể trông giống hệt nhau, và hai chim cùng dòng vẫn có thể trông khác nhau.
Đây là cách làm chuẩn trong nhân giống động vật nói chung khi cần giữ một tổ hợp gen hiếm mà không siết vòng cận huyết: nhân rộng số dòng độc lập cùng mang đặc điểm mục tiêu, rồi lai chéo giữa các dòng thay vì lai trong một dòng. Nó không phải một tính năng riêng của BioBirdDNA — đó là nguyên lý di truyền quần thể áp dụng vào tình huống cụ thể của bạn.
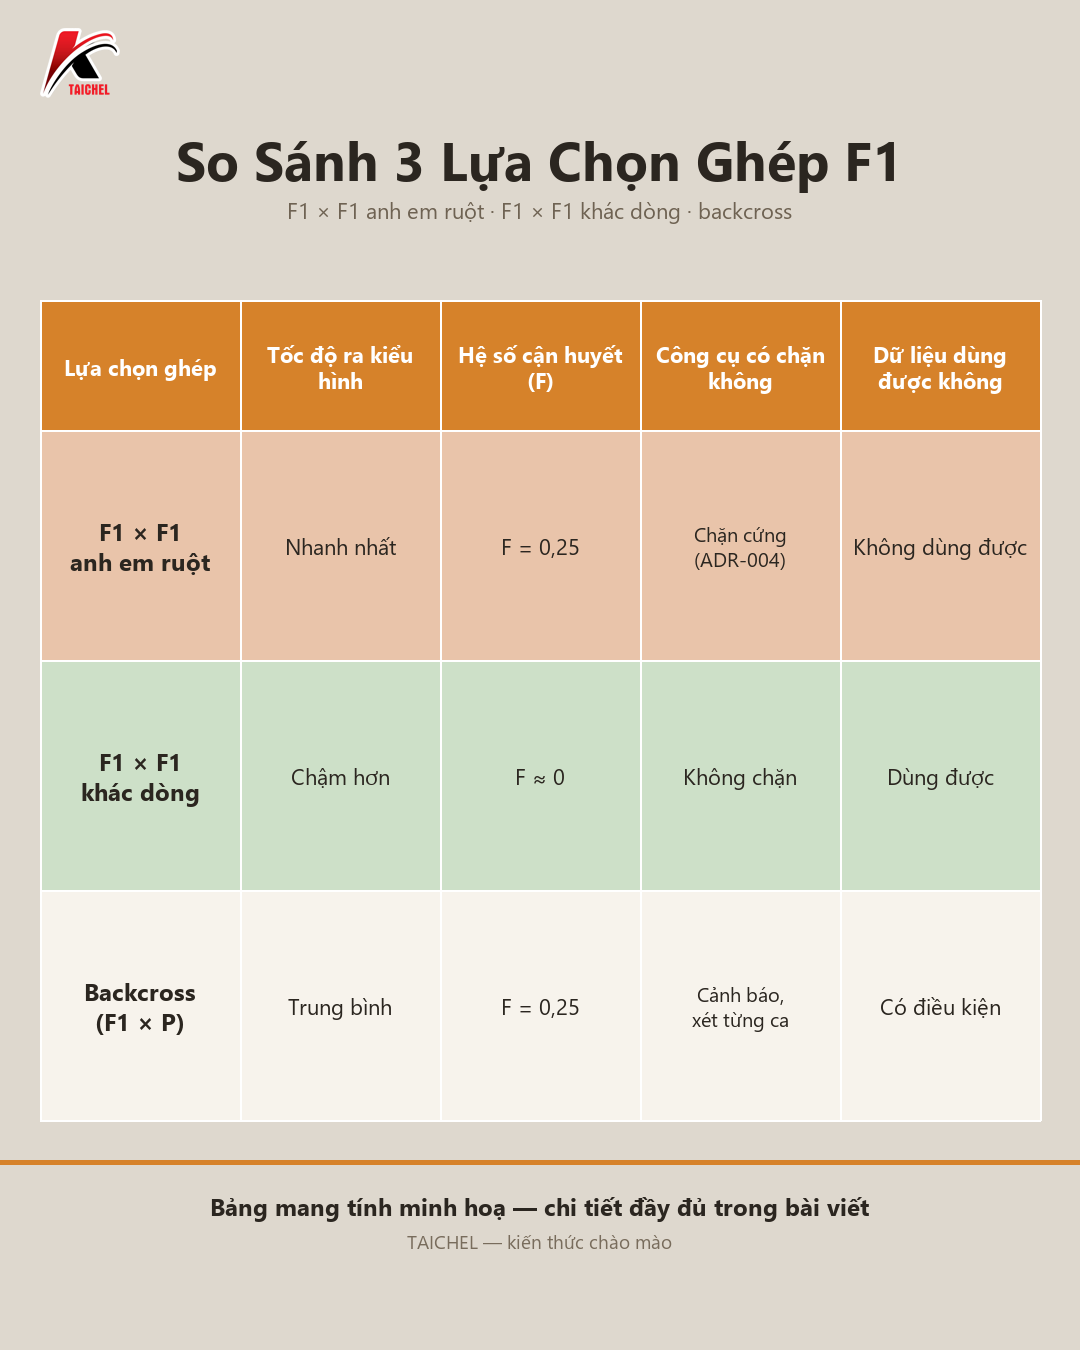
So sánh ba lựa chọn ghép để ra F2 có màu:
| Lựa chọn ghép | Tốc độ ra kiểu hình lặn | Hệ số cận huyết đời con | Công cụ có chặn không | Dữ liệu thu được có dùng được không |
|---|---|---|---|---|
| F1 × F1 anh chị em ruột (full-sibling) | Nhanh nhất — cùng lứa, không cần chờ dòng thứ hai | 0,25 | Có — chặn cứng, không có nút bỏ qua | Không — cặp bị chặn không xuất hiện trong danh sách ghép được phép |
| F1 × F1 khác dòng (hai nguồn độc lập, ghép chéo) | Chậm hơn — phải chờ và xác nhận cả hai dòng cùng mang allele mục tiêu | Gần 0 | Không, miễn phả hệ xác nhận không họ hàng | Có — dùng được cho phân tích di truyền nghiêm túc |
| Backcross F1 × bố hoặc mẹ gốc | Nhanh, về lý thuyết tương đương hoặc nhanh hơn full-sibling | 0,25 — ngang full-sibling vì đây cũng là quan hệ gần | Có — chặn cứng, vì đây là quan hệ trực hệ, cùng nhóm với full-sibling trong ADR-004 | Không — bị chặn giống hệt lựa chọn đầu tiên |
Bảng trên cho thấy vì sao “ghép ngược lại với bố mẹ gốc” không phải cách né hard-block: quan hệ trực hệ (cha–con, ông–cháu) có hệ số cận huyết đời con ngang bằng full-sibling và bị khoá cứng bằng đúng cơ chế đó, không phải một lỗ hổng chưa được cấu hình.
Cái giá thấy rõ ngay, tính theo lịch trình thực tế chứ không chỉ nói chung chung “chậm hơn”: tìm và xác nhận phả hệ nguồn thứ hai thường mất một đến hai tháng nếu đi qua kênh đáng tin; ghép thành công cặp P mới, chờ trứng nở và chim non đủ tuổi chấm phenotype theo rubric M1–M5 mất thêm một mùa sinh sản trọn vẹn (thường ba đến bốn tháng tuỳ điều kiện nuôi); sau đó mới ghép chéo hai dòng F1 để ra F2. Tổng cộng, con đường này chậm hơn ghép luôn F1 sẵn có khoảng nửa năm đến một năm, tuỳ bạn đã có sẵn mối liên hệ với một trại giống thứ hai hay phải tìm từ đầu. Đổi lại, dữ liệu dùng được cho phân tích di truyền nghiêm túc, lứa F2 không mang rủi ro cận huyết gần, và bạn tránh đúng vấn đề mà bài về tỷ lệ 9:3:3:1 đã chỉ ra: thiếu ghi chép chiều ghép và nguồn gốc khiến dữ liệu không dùng được cho suy luận mô hình, dù tỷ lệ đếm được đẹp đến đâu.
Lưu ý: quy trình lai thuận–nghịch (đổi vai trò trống/mái giữa hai dòng) cho thêm thông tin để phân biệt mô hình liên kết Z với mô hình lặn thường độc lập. Nếu đã có hai dòng độc lập, cân nhắc thiết kế lai thuận–nghịch ngay từ đầu; cách ghi lại và kiểm tra thiết kế phép lai nằm ở quy trình F1–F2 an toàn.
Chạy rank-mates thế nào, và vì sao Bông+Nâu không tự làm việc này
Một điểm vận hành hay bị hiểu nhầm: nếu bạn đang dùng action Bông+Nâu (script mô phỏng phép ghép màu) để xem đời con dự kiến ra kiểu hình gì, action đó không tự tính cận huyết. Nó chỉ mô phỏng xác suất kiểu gene và kiểu hình theo mô hình di truyền đang giả định — không biết, và không được thiết kế để biết, hai con chim bạn nhập vào có họ hàng gì với nhau.
Để có đánh giá cận huyết và cổng chặn phả hệ/welfare, bạn phải chạy riêng operation rank-mates của skill biobirddna-genetics:
python -B “<skill-root>/scripts/biobirddna_cli.py” rank-mates –input <file-json> –output <file-json>
Operation này cần danh sách chim trống/mái, posterior kiểu gene theo từng mô hình, dữ liệu phả hệ, trọng số mô hình và các cờ rủi ro — nhiều hơn hẳn dữ liệu tối thiểu mà action mô phỏng màu cần. Đây là lý do thiết kế tách hai việc ra làm hai bước riêng: mô phỏng màu trả lời “nếu ghép, đời con có thể ra sao”; xếp hạng cặp trả lời “cặp này có được phép ghép hay không, và nếu được thì hấp dẫn tới đâu trong số các cặp được phép”. Gộp hai việc vào một hàm điểm duy nhất chính là rủi ro mà ADR-004 được viết ra để chặn.
Phiên bản hiện tại (v0.2.0) chưa tách được hai mục tiêu research_pairing (cặp giúp phân biệt mô hình tốt nhất) và target_pairing (cặp tăng xác suất kiểu hình mục tiêu nhưng vẫn qua cổng phúc lợi) — kết quả trả về là một bảng xếp hạng chung, không được gắn nhãn là một trong hai loại, và không dùng như phê duyệt ghép thật. Muốn chạy được, bạn cần chuẩn hoá hồ sơ trước bằng biểu mẫu như form theo dõi Bông × Nâu F1–F2 và chấm phenotype đúng mốc theo rubric M1–M5 — thiếu hai đầu vào này, kết quả sẽ tụt hạng bằng chứng hoặc bị từ chối chấm ngay từ cổng dữ liệu.
Kết quả trả về luôn kèm trạng thái decision_support_only và human_review_required — công cụ không tự phê duyệt một cặp ghép thật, dù cặp đó vượt qua mọi cổng chặn. Người quyết định cuối cùng vẫn là bạn.
Dấu hiệu cần theo dõi ở lứa con
Nếu bạn đã ghép hoặc đang cân nhắc một cặp có quan hệ gần nhưng nằm ngoài phạm vi bị chặn cứng (ví dụ anh em họ, hoặc half-sibling chỉ chung cha hoặc chỉ chung mẹ) — không phải cha–con hay ông–cháu, hai quan hệ này là “trực hệ” và đã bị khoá cứng giống hệt full-sibling như đã nói ở phần ADR-004 — phần này giúp bạn theo dõi có hệ thống thay vì đoán mò. Tách rõ năm phần theo đúng chuẩn theo dõi chuyên môn — không gộp chung để tránh kết luận vội từ một dấu hiệu đơn lẻ.
Dấu hiệu
- Tỷ lệ trứng không nở cao hơn hẳn so với các lứa khác của cùng trại, dù điều kiện ấp giống nhau.
- Chim non yếu, chậm mổ vỏ, hoặc chết ngay sau khi nở dù trứng đã có phôi phát triển.
- Trọng lượng lứa con không đồng đều bất thường giữa các cá thể cùng lứa.
- Lông mọc chậm, thưa hoặc bất đối xứng rõ rệt so với lứa cùng độ tuổi.
- Tần suất bệnh vặt, tiêu chảy, hô hấp yếu cao hơn ở lứa con so với đàn còn lại.
Nguyên nhân có thể (không chỉ cận huyết)
- Cận huyết gần ở cặp bố mẹ.
- Dinh dưỡng chim bố mẹ trong giai đoạn trước và trong sinh sản không đủ.
- Điều kiện ấp: nhiệt độ, độ ẩm, thời gian đảo trứng không ổn định.
- Bệnh nền của chim bố mẹ chưa được phát hiện, truyền qua trứng.
- Stress môi trường: tiếng ồn, mật độ lồng, thay đổi vị trí lồng đột ngột trong giai đoạn ấp.
Chẩn đoán phân biệt
Đây là phần dễ bị bỏ qua nhất, và cũng là phần nghiên cứu khoa học cho thấy rõ lý do cần thận trọng. Hemmings, West và Birkhead (2012, Biology Letters 8(6):964–967, DOI 10.1098/rsbl.2012.0655, PMID 22977070) nghiên cứu nguyên nhân trứng không nở ở năm loài chim nguy cấp — loài cụ thể không được nêu rõ trong các bản tóm tắt công khai đã kiểm được, và không phải chào mào — và phát hiện rằng nhiều quả trứng bị xếp loại “vô sinh” bằng quan sát thông thường thực chất là phôi đã chết ở giai đoạn rất sớm, không phải do thiếu tinh trùng. Nói cách khác: nhìn một quả trứng không nở, bạn không thể tự kết luận nguyên nhân là cận huyết, vô sinh, hay bệnh nền chỉ bằng mắt thường. Cần ghi chép hệ thống nhiều lứa liên tiếp, so sánh với các cặp không họ hàng trong cùng điều kiện nuôi, trước khi gán một nguyên nhân duy nhất.
Cách theo dõi
- Ghi lại từng quả trứng của từng lứa: có phôi hay không, ngày dự kiến nở, ngày nở thật, sống hay chết, nếu chết thì chết ở giai đoạn nào (chưa có phôi, chết phôi sớm, chết phôi muộn, chết sau nở).
- So sánh cùng chỉ số này giữa cặp đang nghi ngờ và các cặp không họ hàng khác trong cùng trại, cùng mùa.
- Theo dõi ít nhất hai đến ba lứa liên tiếp trước khi rút kết luận — một lứa bất thường có thể chỉ là biến động ngẫu nhiên.
- Chấm phenotype và thể trạng lứa con theo mốc cố định, không chấm tuỳ hứng theo ngày quan sát được.
Hướng xử lý hỗ trợ
Không có hướng dẫn thuốc hay liều lượng trong bài này — đó không phải phạm vi của một bài kiến thức chăn nuôi. Nếu bạn thấy dấu hiệu bất thường lặp lại ở nhiều lứa liên tiếp của cùng một cặp, đặc biệt nếu cặp đó có quan hệ họ hàng gần, hướng xử lý hợp lý là: tách ghi chép riêng cặp đó, ngừng ghép lặp lại cặp đó trong khi chờ đánh giá, và gặp người có chuyên môn nếu chim non có dấu hiệu bệnh lý rõ (bỏ ăn, khó thở, mất thăng bằng, dị tật nhìn thấy) thay vì tự phán đoán nguyên nhân là do di truyền.
Sai lầm phổ biến
- Ghép anh–em ruột “chỉ một lần thử xem sao”. Cận huyết không cộng dồn tuyến tính theo số lần ghép, nhưng mỗi lứa từ cặp đó đều mang cùng mức rủi ro 0,25 — không có “thử một lần rồi thôi” an toàn hơn ghép nhiều lần.
- Dùng kết quả mô phỏng màu (action Bông+Nâu) để tự suy ra cặp này “an toàn”. Action đó không đánh giá quan hệ họ hàng — im lặng về cận huyết không có nghĩa là không có cận huyết.
- Coi trứng không nở là “chắc chắn do cận huyết” mà không loại trừ nguyên nhân khác. Như phần chẩn đoán phân biệt ở trên, phần lớn trường hợp cần ghi chép nhiều lứa để phân biệt, không kết luận từ một lứa.
- Nghĩ rằng chỉ cần đổi tên cặp trong hồ sơ là công cụ sẽ chấp nhận. Cổng chặn dựa trên quan hệ phả hệ thật, không dựa trên tên gọi hay mã số bạn đặt — sửa nhãn không đổi được quan hệ sinh học.
- Chờ đến khi có dấu hiệu bệnh rõ mới bắt đầu ghi chép. Dữ liệu hữu ích nhất là dữ liệu ghi từ lứa đầu tiên, kể cả khi mọi thứ có vẻ bình thường.
Khi nào cần dừng hẳn chương trình ghép
Có ranh giới giữa “cẩn trọng hơn” và “dừng lại”. Cân nhắc dừng hẳn một cặp hoặc một dòng ghép khi:
- Đã theo dõi từ ba lứa liên tiếp trở lên của cùng một cặp có quan hệ họ hàng gần, và tỷ lệ bất thường (trứng không nở, chim non chết sớm, dị tật) cao hơn rõ rệt và ổn định so với các cặp không họ hàng khác trong cùng trại.
- Người có chuyên môn xác nhận có bệnh lý hoặc bất thường phát triển ở lứa con lặp lại nhiều lần, không giải thích được bằng nguyên nhân môi trường hay dinh dưỡng.
- Bạn không còn khả năng duy trì hai dòng độc lập để ghép chéo — tiếp tục chương trình chỉ với một dòng duy nhất đồng nghĩa mọi lựa chọn ghép còn lại đều là ghép gần.
- Mục tiêu ban đầu (xác nhận mô hình di truyền, hay tạo ra kiểu hình ổn định) đã đạt được bằng phương pháp không cận huyết — tiếp tục ghép gần lúc này không còn lý do chính đáng.
Dừng lại không phải thất bại của chương trình lai tạo. Nó là một quyết định dữ liệu, giống như mọi quyết định khác trong quy trình — chỉ khác là lần này dữ liệu nói “đừng tiếp tục theo hướng này”.
Kinh nghiệm chăm sóc không thay thế tư vấn thú y.
Câu hỏi thường gặp
Ghép F1 anh em ruột có luôn cho ra kiểu hình lặn không?
Không luôn luôn, chỉ xác suất cao hơn. Nếu bố mẹ ban đầu không mang allele lặn liên quan, ghép anh em ruột cũng không tạo ra kiểu hình đó từ hư không — cơ chế chỉ làm tăng khả năng gặp lại allele đã có sẵn, không tạo allele mới.
Nếu tôi chỉ có một cặp bố mẹ, làm sao có dòng độc lập thứ hai?
Tìm thêm một nguồn Bông và một nguồn Nâu khác, không họ hàng với cặp gốc — thường qua mua hoặc trao đổi từ trại khác có ghi chép phả hệ đáng tin. Đây là lý do chương trình lai tạo nghiêm túc cần nhiều hơn một cặp bố mẹ ngay từ đầu, không chỉ để nhân số lượng mà để có đường thoát khỏi cận huyết khi cần F2. Việc này cũng giải quyết một vấn đề khác đi kèm: mẫu số F2 quá nhỏ từ một dòng duy nhất — xem thêm bao nhiêu con F2 thì đủ để kết luận.
Công cụ có thể cấu hình để chấp nhận cặp anh em ruột trong trường hợp đặc biệt không?
Theo tài liệu thiết kế, mặc định chặn quan hệ trực hệ và full-sibling; các ngưỡng cận huyết khác ngoài hai trường hợp này có thể cấu hình được, nhưng phải ghi lý do rõ ràng và qua người review — không phải một nút bật/tắt tự do cho người dùng cuối, và full-sibling cùng quan hệ trực hệ không nằm trong phạm vi có thể nới lỏng đó.
Tôi vẫn muốn ghép anh em ruột dù biết rủi ro, tôi nên làm gì?
Đó là quyết định của bạn với chim của bạn, và bài này không có quyền ngăn bạn. Nhưng nếu quyết định vậy, ít nhất hãy ghi chép đầy đủ từng lứa (kể cả trứng không nở, con chết non), theo dõi ít nhất vài lứa liên tiếp trước khi đánh giá, và liên hệ người có chuyên môn ngay khi thấy dấu hiệu bất thường thay vì đợi. Công cụ BioBirdDNA sẽ không tự tính điểm hay phê duyệt cặp này cho bạn — bạn đang tự chịu trách nhiệm hoàn toàn cho quyết định đó.
Kết luận — quyết định nằm ở bạn, công cụ chỉ nói rõ cái giá
Ghép F1 anh chị em ruột ra kiểu hình lặn nhanh hơn là sự thật, không phải huyền thoại. Cái giá — hệ số cận huyết đời con 0,25, nguy cơ giảm sức sống và tỷ lệ nở ở lứa con theo hướng đã ghi nhận ở các loài chim khác — cũng là sự thật, dù chưa có số liệu đo trực tiếp trên chào mào. BioBirdDNA không cố thuyết phục bạn bằng cảm xúc; nó chặn cặp này ở tầng thiết kế, trước khi hàm điểm màu kịp làm bạn phân tâm bởi một con số hấp dẫn. Nếu bạn muốn F2 có màu mà không đánh đổi phúc lợi lứa con, con đường thực tế là đầu tư thêm một dòng độc lập, ghép chéo dòng, và chấp nhận chậm hơn một mùa để có dữ liệu và những con chim khoẻ mạnh thật sự đứng vững.
Để kiểm soát gen màu mong muốn mà không làm suy giảm sức sống của đàn con, bạn cần nắm vững nguyên lý di truyền học về việc tại sao chim chào mào mái xuất hiện màu lông nâu liên kết NST Z trước khi quyết định phối cận huyết.