
Gene màu lông chào mào nghiên cứu tới đâu tính đến năm 2026? Chưa có locus Bông hoặc locus Nâu nào được xác nhận trực tiếp ở chào mào (Pycnonotus jocosus). Tính đến tháng 8/2026, khoa học công bố có một bộ genome tham khảo cho loài này, một vài gene ứng viên hoặc tương quan biểu hiện được suy ra từ nghiên cứu trên gà và cút, và ba nghiên cứu phân tử xác định giới tính đã kiểm chứng thật trên chào mào. Không có gene sắc tố nào trong số đó đã qua bước xác nhận bằng dữ liệu phân tử đồng phân ly trên chính loài chào mào.
Bài này không cố “giải mã” gene Bông hay gene Nâu — không ai làm được việc đó bằng một bài viết. Bài này cũng không dự đoán khi nào locus sẽ được tìm ra, không đưa ra mốc thời gian cho nghiên cứu tương lai, và không gộp kết quả trên gà hay cút thành kết luận cho chào mào. Việc duy nhất bài làm là xếp đúng chỗ những gì đã công bố thật, để người đọc tự phân biệt được đâu là dữ liệu, đâu là suy luận từ loài khác, và đâu là chỗ trống chưa ai lấp.
Bảng dưới đây tóm tắt toàn bộ bảy nguồn dùng trong bài — mỗi dòng nêu rõ nghiên cứu trên loài nào, phát hiện gì, mức kết luận tới đâu, và áp dụng được gì cho chào mào. Đọc riêng bảng này là đủ nắm được cốt lõi; phần thân bài bên dưới giải thích chi tiết từng dòng.
| Nghiên cứu | Loài | Phát hiện chính | Mức kết luận | Áp dụng cho chào mào tới đâu |
|---|---|---|---|---|
| Li và cộng sự (2023) | Gà (Gallus gallus) | SLC45A2 và CDKN2A định vị trong vùng 10,46 Mb trên nhiễm sắc thể Z, gần như hoàn toàn tương ứng với kiểu lông sub-Columbian | Gene ứng viên (candidate gene) | Không áp dụng — chưa có bước nào kiểm tra trên chào mào |
| Xu, Zhang, Pang (2013) | Cút (Coturnix coturnix) | Biểu hiện TYR/TYRP1 khác nhau giữa nhóm màu lông; hai SNP tìm thấy trong TYRP1 không có liên hệ ý nghĩa thống kê với kiểu hình | Tương quan biểu hiện gene — yếu hơn một association biến thể-kiểu hình | Không áp dụng — khác họ hoàn toàn với chào mào |
| Mundy (2005, tổng quan) | Ba loài không họ hàng chào mào: bananaquit, ngỗng tuyết, cướp biển Bắc Cực | MC1R được xác định là nguyên nhân trực tiếp của biến dị hắc tố | Đã xác nhận — nhưng chỉ ở ba loài đó | Không áp dụng — không đề cập họ Pycnonotidae; chỉ dùng để minh hoạ chuẩn phương pháp luận |
| Mongkolphan và cộng sự (2017) | Chào mào (Pycnonotus jocosus) | Quy trình xác định giới tính bằng ADN bộ gen trên chào mào cảnh tại Thái Lan | Quy trình đã công bố, bình duyệt — không phải gene màu | Áp dụng trực tiếp, nhưng chỉ cho giới tính |
| Changtor & Yimtragool (2020) | Chào mào | So sánh phương pháp tách chiết ADN và bộ mồi PCR CHD1F/CHD1R cho định giới | Quy trình đã công bố, bình duyệt | Áp dụng trực tiếp, nhưng chỉ cho giới tính |
| Changtor, Gupta, Yimtragool (2022) | Chào mào | Kỹ thuật LAMP với mồi CHD-Z/CHD-W trên 23 mẫu máu, nhạy hơn PCR chuẩn 10 lần, chạy được từ ADN lông bằng kỹ thuật HotSHOT | Quy trình đã công bố, cải tiến kỹ thuật | Áp dụng trực tiếp, nhưng chỉ cho giới tính |
| NCBI Datasets — GCA_013400435.1 | Chào mào | Genome tham khảo mức scaffold, khoảng 15.553 gene được dự đoán cấu trúc, không có chú giải chức năng sắc tố | Tài nguyên tham khảo — không phải bằng chứng gene | Có sẵn để dùng làm bộ khung, nhưng chưa liên kết được với bất kỳ locus màu nào |
Bấm Thêm để Google ưu tiên hiện bài chăm chim của TAICHEL cho bạn.
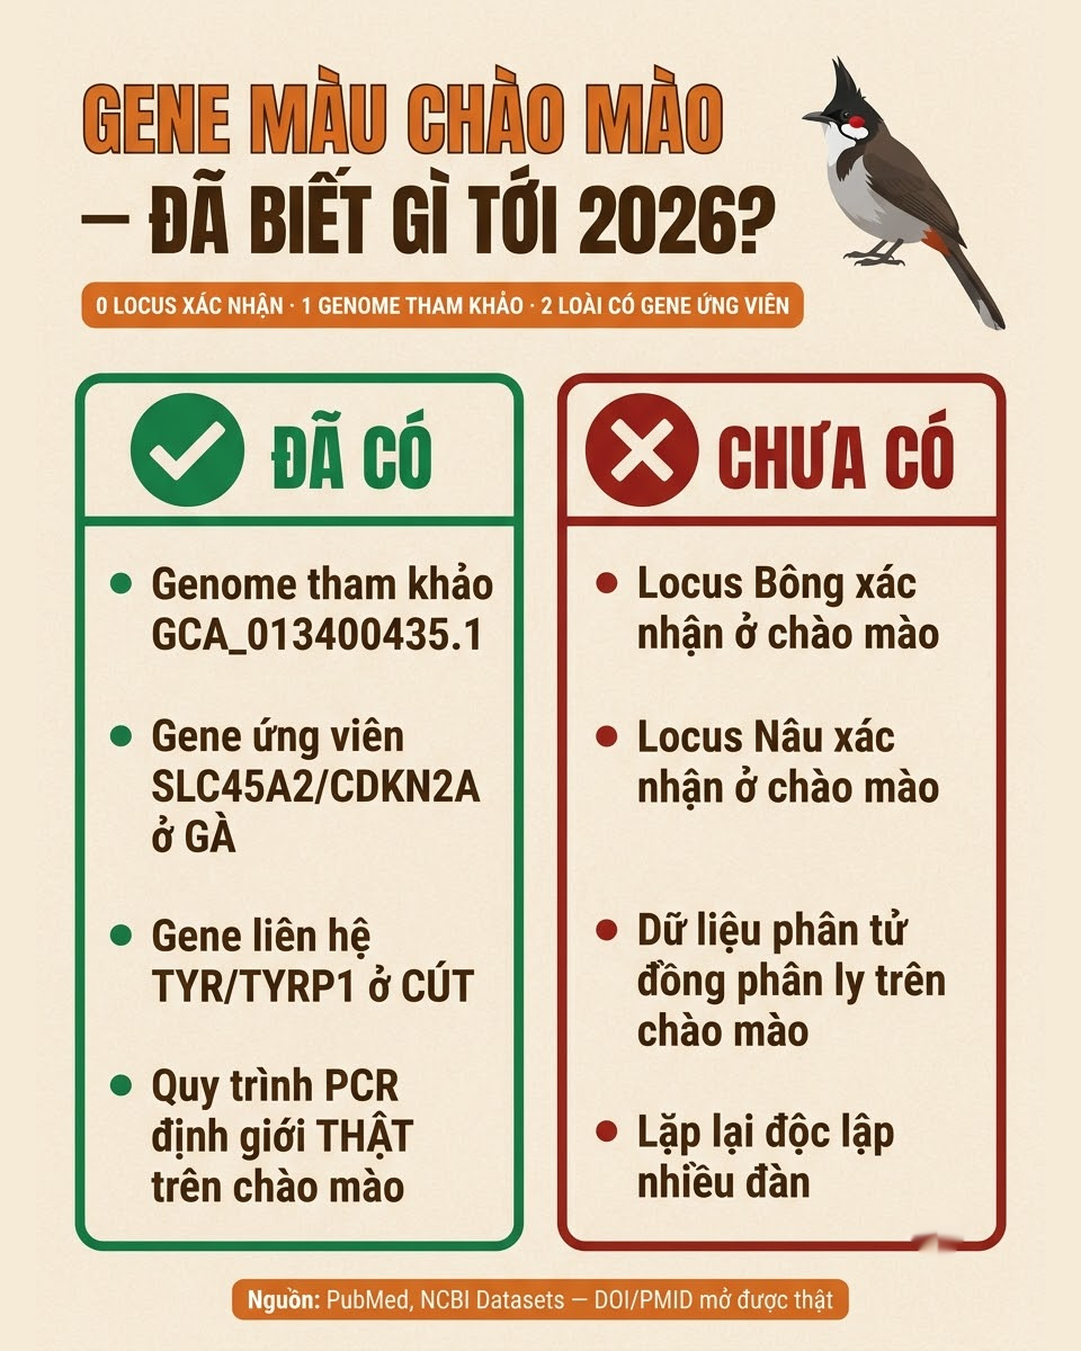
Gene màu lông chào mào nghiên cứu tới đâu: một bộ genome tham khảo, không phải bằng chứng gene màu
Năm 2020, dự án Bird 10,000 Genomes (B10K) công bố bộ giải trình tự genome cho chào mào, mã số lưu trữ GCA_013400435.1 trên NCBI, tên assembly ASM1340043v1, mức lắp ráp scaffold, dựng từ một cá thể mái ký hiệu B10K-DU-002-42, thuộc BioProject PRJNA545868 (nhánh “Family phase” của B10K, nằm trong khuôn khổ lớn hơn của Earth BioGenome Project). Đây là dữ liệu thật, tra được công khai trên NCBI Datasets.
Bản ghi này đi kèm một lớp chú giải cấu trúc — khoảng 15.553 gene được dự đoán, trong đó khoảng 13.900 gene mã hoá protein — do chính B10K Consortium nộp cùng đợt. Nhưng chú giải cấu trúc chỉ trả lời câu hỏi “gene nằm ở đâu trên bộ khung trình tự”, không trả lời câu hỏi “gene nào trong số đó quy định màu Bông hay màu Nâu”. Không có lớp chú giải chức năng riêng cho sắc tố lông đi kèm bản ghi này.
Nói cách khác, một genome tham khảo trả lời một câu hỏi khác hẳn câu hỏi “gene nào quy định màu Bông hay màu Nâu”. Nó cho biết trình tự ADN của loài trông như thế nào ở mức tổng thể — bộ khung để so sánh, để định vị gene ứng viên sau này, để chạy các phân tích liên kết nếu có đủ dữ liệu phả hệ và đời con. Nó không tự nói gene nào trong bộ khung đó liên quan tới màu lông, càng không nói gene nào đã được xác nhận gây ra kiểu hình Bông hay Nâu. Coi một genome đã công bố là “bằng chứng gene màu đã có” là một bước nhảy sai.
Cái suy được từ loài khác — và giới hạn thật của suy luận đó
Phần lớn “hiểu biết” đang lưu hành về gene màu lông chim đến từ gà và một số loài gia cầm chăn nuôi, vì đó là nơi có đủ tiền, đủ quy mô đàn, và đủ áp lực kinh tế để tài trợ nghiên cứu di truyền. Hai ví dụ dưới đây là thật, có DOI mở được, nhưng cả hai đều dừng ở mức bằng chứng thấp hơn “đã xác nhận”, và cả hai đều nghiên cứu trên loài khác chào mào.
Gà: SLC45A2 và CDKN2A liên quan kiểu lông sub-Columbian
Li và cộng sự (2023), đăng trên Poultry Science 102(6):102665, nghiên cứu trên gà dòng H — giống có lông trắng gần như toàn thân trừ phần cổ, cánh, đuôi mang kiểu vằn giống kiểu Columbian cổ điển. Thiết kế nghiên cứu gồm hai bước. Bước một, nhóm tác giả dựng một quần thể lai F3 giữa gà trống lông vàng và gà mái lông sub-Columbian để kiểm tra giả thuyết kiểu lông di truyền liên kết giới tính, trội (sex-linked dominant). Bước hai, để định vị vùng gene, họ dùng gà mái thế hệ F2 mang hai kiểu lông cùng dòng bố mẹ, chạy BSA-seq (bulked segregant analysis kết hợp giải trình tự), định vị được kiểu lông sub-Columbian vào một vùng rộng 10,46 Mb trên nhiễm sắc thể Z.
Trong vùng đó, phân tích RNA-seq trên mô nang lông ở cổ và cánh của hai nhóm màu lông cho thấy chỉ một gene biểu hiện khác biệt có ý nghĩa thống kê: SLC45A2. Genotyping bằng kỹ thuật KASP sau đó tìm thấy hai biến thể trong SLC45A2 và một haplotype trong gene CDKN2A có liên hệ gần như hoàn toàn với kiểu hình quan sát được. Nhóm tác giả tiếp tục dựng một thí nghiệm lai riêng để kiểm chứng lại locus này. Đây là quy trình định vị gene ứng viên bài bản — nhưng chính nhóm tác giả cũng chỉ gọi SLC45A2 và CDKN2A là gene ứng viên, không phải kết luận đã xác nhận cơ chế nhân quả. Nghiên cứu này thực hiện trên Gallus gallus (gà), không phải chào mào, và không có bước nào kiểm tra liệu SLC45A2 hay CDKN2A có tồn tại hoặc có vai trò tương tự ở Pycnonotus jocosus hay không.
Cút: TYR và TYRP1 — tương quan biểu hiện, không phải liên hệ biến thể gene
Xu, Zhang và Pang (2013), đăng trên Asian-Australasian Journal of Animal Sciences 26(11):1518-1522, khảo sát ba nhóm cút Coturnix coturnix phân theo màu lông (nâu hạt dẻ, trắng, đen), dùng giải trình tự cDNA và kỹ thuật PCR-SSCP để tìm biến thể trong hai gene TYR (tyrosinase) và TYRP1 (tyrosinase-related protein 1). Kết quả cần đọc kỹ: nhóm tác giả tìm thấy hai SNP trong vùng mã hoá của TYRP1, nhưng cả hai không có liên hệ ý nghĩa thống kê với kiểu hình màu lông — nói cách khác, phép kiểm định biến thể gene-kiểu hình cho kết quả âm tính.
Điều nhóm tác giả thật sự tìm thấy là một tương quan khác: mức biểu hiện (expression) của TYR cao hơn ở nhóm cút lông đen so với nhóm lông nâu hạt dẻ, còn biểu hiện của TYRP1 lại thấp hơn ở nhóm lông đen. Đây là bằng chứng dạng tương quan biểu hiện gene giữa các nhóm kiểu hình — một mức bằng chứng thấp hơn cả một association biến thể-kiểu hình thông thường, vì nó không chỉ ra biến thể ADN cụ thể nào gây ra khác biệt biểu hiện đó. Loài nghiên cứu là cút, một họ chim khác chào mào cả về phân loại lẫn sắc tố lông biểu hiện, và kết quả này không được kiểm tra thêm ở bất kỳ loài chim cảnh nào khác.
Khi một gene chim thật sự được xác nhận thì trông như thế nào
Trước khi đọc tiếp, cần nói thẳng giới hạn của ví dụ này: gene được nhắc dưới đây là MC1R, xác nhận ở ba loài chim cụ thể — bananaquit, ngỗng tuyết, và cướp biển Bắc Cực (arctic skua) — không loài nào trong số đó họ hàng gần với chào mào, và bài tổng quan gốc không hề đề cập tới họ Chào mào (Pycnonotidae). Ví dụ này chỉ dùng để minh hoạ chuẩn phương pháp luận của việc “xác nhận” trông như thế nào, không phải bằng chứng sinh học áp dụng được cho chào mào.
Với caveat đó, bài tổng quan của Mundy (2005) trên Proceedings of the Royal Society B 272(1573):1633-1640 cho thấy MC1R được xác định là nguyên nhân trực tiếp của biến dị hắc tố ở ba loài không họ hàng gần nhau kể trên. Mức “xác nhận” ở đây đòi hỏi phân tích trình tự gene trực tiếp trên nhiều cá thể, đối chiếu kiểu hình-kiểu gene rõ ràng, và thường có thêm bằng chứng chức năng — chứ không dừng ở một quần thể lai đơn lẻ hay một phép kiểm định thống kê đơn lẻ.
Đây là chuẩn mà chưa nghiên cứu nào trên chào mào từng chạm tới cho locus Bông hoặc Nâu.
Cái đã có thật cho đúng loài chào mào: quy trình xác định giới tính bằng PCR
Có một mảng nghiên cứu phân tử thật sự đã làm trên chính Pycnonotus jocosus, chỉ khác là nó không nói về màu lông — nó nói về giới tính. Ba nghiên cứu dưới đây, cùng một nhóm tác giả nòng cốt tại Thái Lan, cho thấy quy trình càng về sau càng được tối ưu để dễ áp dụng thực tế hơn.
Mongkolphan và cộng sự (2017), đăng trên Japanese Journal of Veterinary Research 65(3):145-149, công bố quy trình xác định giới tính bằng ADN bộ gen trên chào mào cảnh tại Thái Lan — nghiên cứu đầu tiên đặt nền cho việc lấy mẫu và đọc kết quả phân tử trên đúng loài này.
Changtor và Yimtragool (2020), đăng trên International Journal of Poultry Science 19(6):244-251, so sánh nhiều phương pháp tách chiết ADN và nhiều bộ mồi PCR khác nhau, kết luận cặp mồi CHD1F/CHD1R xác định đúng giới tính chào mào một cách đáng tin cậy — một bước chuẩn hoá quy trình để các phòng lab khác lặp lại được.
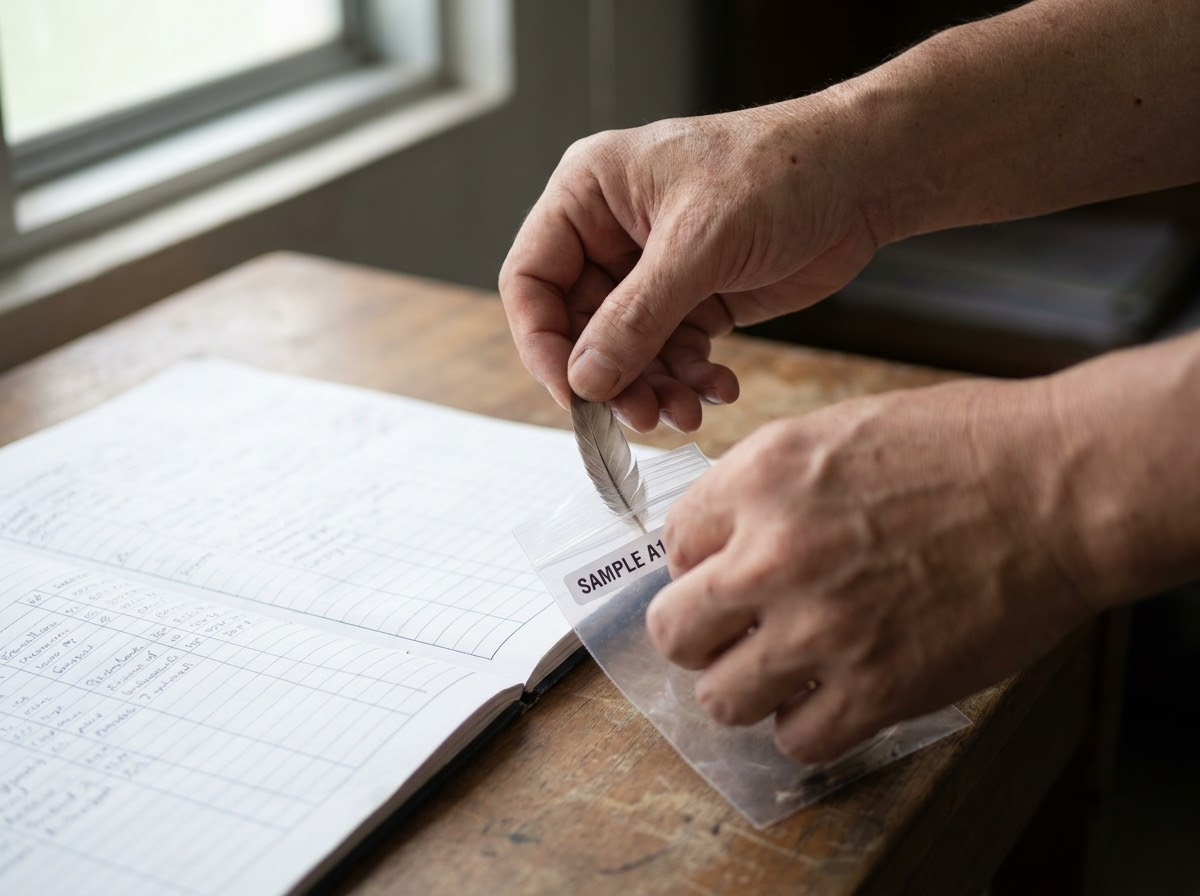
Changtor, Gupta và Yimtragool (2022), đăng trên Ecology and Evolution 12(10):e9401, tiến thêm một bước: thử nghiệm trên 23 mẫu máu thật, thiết kế hai bộ mồi LAMP nhắm vào gene CHD-Z và CHD-W, so sánh trực tiếp với PCR chuẩn. Kết quả đo được: LAMP nhạy hơn PCR khoảng 10 lần ở nồng độ ADN 1 nanogram, và khi đọc kết quả bằng phương pháp đo màu (colorimetric assay, dùng thuốc nhuộm GelRed và SYTO 9) thì độ chính xác đạt 100% so với điện di đối chiếu. Đáng chú ý nhất: quy trình tối ưu còn chạy được với ADN tách từ lông chim bằng kỹ thuật HotSHOT đơn giản, không cần lấy máu — nghĩa là khả thi để áp dụng ngoài thực địa, không đòi hỏi phòng lab đầy đủ thiết bị.
Ba nghiên cứu này quan trọng không phải vì chúng nói về gene màu — chúng không nói — mà vì chúng cho thấy việc lấy mẫu ADN, chạy PCR hoặc LAMP, và đọc kết quả phân tử trên đúng loài chào mào là khả thi, đã có quy trình công bố, đã qua bình duyệt, và đang được tối ưu dần để dễ dùng hơn theo thời gian. Nói cách khác: hạ tầng kỹ thuật để một ngày nào đó làm nghiên cứu gene màu nghiêm túc trên chào mào không phải không có — chỉ là chưa ai áp nó vào câu hỏi màu lông. Việc xác định đúng giới tính bằng phương pháp này cũng chính là điều kiện bắt buộc cho bất cứ nghiên cứu di truyền liên kết Z nào sau này (xem thêm xác minh giới tính chào mào bằng DNA, bằng lai liên kết Z).
Khoảng cách giữa “biết ở loài khác” và “xác nhận ở chào mào” — cần gì để lấp
Khoảng trống này không mơ hồ. Nó gồm bốn điều kiện cụ thể, đo được, và ai làm nghiên cứu di truyền định lượng cũng biết còn thiếu gì:
- Cỡ mẫu đủ lớn. Một vài con đổi màu không phải bằng chứng gene. Với mô hình di truyền đơn giản nhất — một gene, hai alen — cần đủ số cá thể đời con để phân biệt được các tỷ lệ phân ly cạnh tranh nhau (ví dụ 1:1 so với 3:1) ở mức tin cậy thống kê chấp nhận được, chứ không phải chỉ khớp “gần đúng” bằng mắt trên một lứa nhỏ; càng nhiều gene tham gia, cỡ mẫu cần càng lớn hơn nhiều lần (xem F2 chào mào bao nhiêu con thì đủ).
- Thiết kế ghép có kiểm soát. Cần phả hệ nhiều thế hệ, ghép cả hai chiều trống-mái (lai thuận và lai nghịch, để loại trừ hiệu ứng liên kết giới tính giả), và phép lai kiểm tra ngược (test cross) với cá thể mang kiểu gene đã biết — đúng như cách Li và cộng sự (2023) làm với gà: không dừng ở một lứa đơn lẻ rồi suy diễn ngược, mà chủ động dựng thêm quần thể riêng để xác nhận lại (xem phả hệ chào mào Bông Nâu, kiểm tra qua F1-F2).
- Giới tính xác nhận bằng ADN, không phải bằng ước đoán ngoại hình. Các mô hình liên kết Z chỉ có ý nghĩa khi biết chắc con nào trống, con nào mái ngay từ khi còn nhỏ, trước khi bộc lộ đủ đặc điểm ngoại hình để phân biệt bằng mắt — chính là chỗ ba nghiên cứu PCR/LAMP ở trên trở nên cần thiết, vì chúng cho phép xác định giới tính chính xác từ giai đoạn con non (xem thêm chào mào mái màu Nâu, mô hình liên kết Z).
- Lặp lại độc lập ở nhiều đàn. Một kết quả đẹp trên một đàn không đủ, vì có thể là trùng hợp của riêng dòng máu đó; cần vài quần thể độc lập, từ những đàn không cùng nguồn gốc, mới tính là mô hình phân ly được hỗ trợ. Từ đó tới mức locus được xác nhận còn cần thêm một bước nữa: dữ liệu phân tử đồng phân ly — tức là biến thể ADN cụ thể phải song hành đúng với kiểu hình trong từng gia đình độc lập, đúng chuẩn mà ví dụ MC1R ở trên đã đạt được nhưng chưa nghiên cứu nào trên chào mào từng làm.
Cho tới khi bốn điều kiện trên hội đủ và có bên độc lập xác minh, phát biểu đúng nhất vẫn là: một số gene sắc tố đã là gene ứng viên ở loài khác (gà), một số khác mới dừng ở mức tương quan biểu hiện (cút), có quy trình phân tử khả thi đã làm thật trên chào mào (nhưng cho giới tính, chưa cho màu), và có genome tham khảo để tương lai dùng — nhưng chưa có locus màu lông nào đã qua xác nhận trên chính con chào mào. Các phân tích liên kết gene trên những bài khác của TAICHEL — mô hình tần số tái tổ hợp r, tỷ lệ 9:3:3:1 — đều là mô hình toán học chạy trên dữ liệu đời con, không phải bằng chứng phân tử (xem gene liên kết chào mào, lai màu và tỷ lệ 9:3:3:1 chào mào, vì sao chưa kết luận được).
Người nuôi đóng góp được gì vào khoảng trống này
Đây là chỗ người nuôi thật sự có vai trò, chứ không chỉ đứng chờ nghiên cứu hàn lâm. Khoa học về gene màu chim cảnh ở nhiều loài trên thế giới thường bắt đầu từ đúng nguồn: dữ liệu sinh sản được ghi chép đều đặn, nhiều thế hệ, nhiều đàn, bởi chính người nuôi. Chào mào có lợi thế là vòng đời sinh sản ngắn hơn nhiều loài chim cảnh khác và cộng đồng người ghép màu ở Việt Nam đã đông — điều còn thiếu không phải là chim, mà là cách ghi chép đủ chuẩn để dữ liệu có thể dùng được cho phân tích nghiêm túc sau này.
Bốn việc cụ thể người nuôi làm được ngay, đối chiếu trực tiếp với bốn điều kiện vừa nêu ở trên: một, ghi đúng mã cá thể qua từng thế hệ (bố, mẹ, ngày nở, mã lứa) thay vì chỉ nhớ bằng mắt — đây là nền cho thiết kế ghép có kiểm soát; hai, xác định giới tính bằng phương pháp đáng tin (lấy mẫu lông hoặc máu gửi xét nghiệm PCR/LAMP) thay vì đoán theo ngoại hình ngay khi chim còn non, đúng lúc ngoại hình chưa đủ rõ để phân biệt; ba, giữ lại toàn bộ số liệu lứa đẻ kể cả trứng không nở hay con chết non thay vì chỉ nhớ những lứa “đẹp” — thiếu dữ liệu âm tính này là lý do phổ biến nhất khiến cỡ mẫu thực tế nhỏ hơn nhiều so với số lứa đã ấp; bốn, chia sẻ dữ liệu chuẩn hoá với người ghép khác thay vì giữ riêng từng đàn — đây chính là điều kiện “lặp lại độc lập ở nhiều đàn” mà một đàn đơn lẻ không bao giờ tự đáp ứng được.
Không có bốn việc này, dữ liệu dù nhiều tới đâu cũng không đủ điều kiện lên tới mức mô hình phân ly được hỗ trợ, nói gì tới xác nhận locus. Cách ghi cụ thể theo từng mốc tuổi lông được trình bày riêng trong bài về rubric chấm màu (xem hướng dẫn ghi chép phenotype chào mào theo mốc tuổi lông), và một công cụ ghi chép thực hành cụ thể đã có sẵn để dùng ngay (xem form theo dõi chào mào Bông Nâu F1-F2).
Người nuôi cũng có thể tự chạy mô hình thăm dò trên dữ liệu của mình bằng công cụ phân tích, miễn là hiểu rõ kết quả chỉ là mô hình toán học so sánh các giả thuyết trên cùng một tập dữ liệu — không phải phán quyết gene đã tồn tại (xem AI dự đoán màu lông chào mào bằng lai). Toàn bộ vốn từ vựng cần để đọc đúng những kết quả này — phenotype, genotype, bic_weight, evidence grade — được giải thích riêng trong bài từ điển thuật ngữ của cùng chuỗi bài này (xem từ điển di truyền màu lông chào mào).
Tài liệu tham khảo
Based on articles retrieved from PubMed. Ngày truy cập toàn bộ nguồn dưới đây: 05/08/2026.
- Li R, Wang X, Wang Y, Liu D, Zhang Y, Liu Y, Niu X, Han R, Li H, Jiang R, Sun G, Li G, Tian Y, Liu X, Kang X, Li Z (2023). Research Note: Combined analysis of BSA-seq based mapping and RNA-seq reveals candidate genes associated with sub-Columbian plumage in H line chickens. Poultry Science 102(6):102665. DOI: 10.1016/j.psj.2023.102665. PMID: 37068355.
- Xu Y, Zhang XH, Pang YZ (2013). Association of Tyrosinase (TYR) and Tyrosinase-related Protein 1 (TYRP1) with Melanic Plumage Color in Korean Quails (Coturnix coturnix). Asian-Australasian Journal of Animal Sciences 26(11):1518-1522. DOI: 10.5713/ajas.2013.13162. PMID: 25049736.
- Mundy NI (2005). A window on the genetics of evolution: MC1R and plumage colouration in birds. Proceedings of the Royal Society B: Biological Sciences 272(1573):1633-1640. DOI: 10.1098/rspb.2005.3107. PMID: 16087416.
- Mongkolphan C, Sangkachai N, Chamsai T, Sariya L, Bhusri B, Suwanpakdee S, Jiemtaweeboon S, Rittem S, Suksai P (2017). Genomic DNA sex identification in pet red whiskered bulbul (Pycnonotus jocosus) in Thailand. Japanese Journal of Veterinary Research 65(3):145-149.
- Changtor P, Yimtragool N (2020). Comparison of DNA Extraction Methods and Selection of Primer Sets for Sex Identification of the Red-Whiskered Bulbul (Pycnonotus jocosus). International Journal of Poultry Science 19(6):244-251. DOI: 10.3923/ijps.2020.244.251.
- Changtor P, Gupta YM, Yimtragool N (2022). Optimization and application of loop-mediated isothermal amplification technique for sex identification in red-whiskered bulbul (Pycnonotus jocosus). Ecology and Evolution 12(10):e9401. DOI: 10.1002/ece3.9401. PMID: 36225838.
- NCBI Datasets, Genome assembly GCA_013400435.1 (Pycnonotus jocosus, assembly ASM1340043v1, mức scaffold, dự án Bird 10,000 Genomes/B10K, BioProject PRJNA545868). Truy cập trực tiếp NCBI Datasets ngày 05/08/2026.
Câu hỏi thường gặp
Vậy có gene nào đã xác nhận cho màu Bông hoặc màu Nâu ở chào mào chưa?
Chưa. Tính đến 08/2026, không có công bố khoa học bình duyệt nào xác nhận locus hoặc biến thể gene cụ thể cho hai kiểu hình này ở Pycnonotus jocosus. Có gene ứng viên ở gà, có tương quan biểu hiện gene ở cút, có genome tham khảo của chào mào, nhưng chưa có bước kết nối những điều đó bằng dữ liệu phân tử trên chính loài chào mào.
Nếu SLC45A2 đã tìm thấy ở gà, tại sao không suy luôn cho chào mào?
Vì gà và chào mào khác họ, khác quá trình tiến hoá sắc tố, và một gene ứng viên ở loài này không tự động có mặt hoặc có vai trò giống hệt ở loài khác. Ngay trong bài gốc, nhóm tác giả cũng chỉ gọi SLC45A2 và CDKN2A là gene ứng viên trên chính gà, không phải kết luận đã xác nhận — nên càng không thể nâng cấp nó thành kết luận cho một loài khác chưa từng được kiểm tra.
Người bán nói chim của họ đã được xét nghiệm và kết luận mang gene Bông thì sao?
Cứ hỏi thẳng: xét nghiệm ở đâu, gene/locus cụ thể nào, công bố ở tạp chí nào, có DOI hay PMID không. Tính đến thời điểm bài này viết, không có xét nghiệm thương mại nào công bố cơ sở khoa học đã bình duyệt cho việc xác định gene Bông hoặc Nâu ở chào mào — nếu người bán không đưa ra được nguồn cụ thể, đó là lời quảng cáo, không phải kết quả xét nghiệm.
Bao giờ thì khoa học có câu trả lời chắc chắn?
Bài này không đưa mốc thời gian, vì điều đó phụ thuộc vào việc có nhóm nghiên cứu nào đầu tư đủ nguồn lực hay không. Điều chắc hơn: càng nhiều người nuôi ghi chép dữ liệu sinh sản chuẩn, khoảng cách giữa “biết ở loài khác” và “xác nhận ở chào mào” càng có cơ hội được lấp bằng dữ liệu thật.
Kết luận
Nắm chắc ba điều đủ để không bị cuốn theo lời quảng cáo “chim gene đã xác nhận”: một, chào mào đã có genome tham khảo nhưng đó không phải bằng chứng gene màu; hai, SLC45A2 và CDKN2A mới dừng ở mức gene ứng viên trên gà, còn TYR và TYRP1 ở cút mới chỉ có tương quan biểu hiện — cả hai đều không phải trên chào mào; ba, quy trình phân tử khả thi trên chính chào mào đã có thật, ngày càng tối ưu — cho giới tính, chưa cho màu lông. Gặp khẳng định nào về “gene Bông” hay “gene Nâu” đã xác nhận, câu hỏi cần hỏi luôn là: dữ liệu nào, trên loài nào, đã qua bình duyệt chưa. Với người đang ghép màu, việc có ích nhất ngay bây giờ là ghi chép đúng chuẩn từ hôm nay — để khi nghiên cứu nghiêm túc trên chào mào bắt đầu, dữ liệu của chính đàn chim mình đã sẵn sàng dùng được.